A administração de taurina neutraliza o impacto associado ao envelhecimento da regeneração do músculo esquelético, reduzindo a inflamação e o estresse oxidativo Parte 1
Jun 12, 2023
Abstrato:A sarcopenia, que ocorre durante o envelhecimento, é caracterizada pela perda gradual de massa e função muscular esquelética, resultando em um declínio funcional nas habilidades físicas. Vários fatores contribuem para o aparecimento da sarcopenia, incluindo capacidade regenerativa reduzida, inflamação crônica de baixo grau, disfunção mitocondrial e aumento do estresse oxidativo, levando à ativação de vias catabólicas. A atividade física e a ingestão adequada de proteínas são consideradas estratégias eficazes capazes de reduzir a incidência e a gravidade da sarcopenia, exercendo efeitos benéficos na melhora da resposta anabólica muscular durante o envelhecimento. A taurina é um aminoácido não essencial altamente expresso nos tecidos dos mamíferos e, em particular, no músculo esquelético onde está envolvido na regulação de processos biológicos e onde atua como fator antioxidante e anti-inflamatório. Aqui, avaliamos se a administração de taurina em camundongos velhos neutraliza os efeitos fisiopatológicos do envelhecimento no músculo esquelético. Mostramos que, em músculos lesionados, a taurina potencializa o processo regenerativo ao diminuir a resposta inflamatória e preservar a integridade da fibra muscular. Além disso, a taurina atenua a produção de ROS em músculos envelhecidos, mantendo um equilíbrio redox celular adequado, atuando como uma molécula antioxidante. Embora mais estudos sejam necessários para melhor elucidar os mecanismos moleculares responsáveis pelo efeito benéfico da taurina na homeostase do músculo esquelético, esses dados demonstram que a administração de taurina melhora o microambiente permitindo um processo regenerativo eficiente e atenuação das vias catabólicas relacionadas ao aparecimento da sarcopenia.
O glicosídeo de cistanche também pode aumentar a atividade de SOD nos tecidos do coração e do fígado e reduzir significativamente o conteúdo de lipofuscina e MDA em cada tecido, eliminando efetivamente vários radicais reativos de oxigênio (OH-, H₂O₂, etc.) e protegendo contra danos ao DNA causados por radicais OH. Os glicosídeos feniletanóides cistanche têm uma forte capacidade de eliminação de radicais livres, uma capacidade redutora maior do que a vitamina C, melhoram a atividade de SOD na suspensão de esperma, reduzem o conteúdo de MDA e têm um certo efeito protetor na função da membrana espermática. Os polissacarídeos Cistanche podem aumentar a atividade de SOD e GSH-Px em eritrócitos e tecidos pulmonares de camundongos experimentalmente senescentes causados por D-galactose, bem como reduzir o conteúdo de MDA e colágeno no pulmão e no plasma e aumentar o conteúdo de elastina, têm um bom efeito de eliminação no DPPH, prolongar o tempo de hipóxia em camundongos senescentes, melhorar a atividade de SOD no soro e retardar a degeneração fisiológica do pulmão em camundongos experimentalmente senescentes Com degeneração morfológica celular, experimentos mostraram que Cistanche tem boa capacidade antioxidante e tem potencial para ser um medicamento para prevenir e tratar doenças de envelhecimento da pele. Ao mesmo tempo, o echinacoside em Cistanche tem uma capacidade significativa de eliminar os radicais livres DPPH e tem a capacidade de eliminar espécies reativas de oxigênio e prevenir a degradação do colágeno induzida por radicais livres, e também tem um bom efeito de reparo nos danos causados pelos radicais livres da timina.

Clique em Cistanche Tubulosa
【Para mais informações:george.deng@wecistanche.com / WhatApp:86 13632399501】
1. Introdução
O envelhecimento é caracterizado pelo comprometimento gradual das principais funções fisiológicas e bioquímicas dos órgãos e tecidos, e muitas vezes está associado a uma perda progressiva de massa e força muscular esquelética, condição conhecida como sarcopenia [1]. Os mecanismos responsáveis pela sarcopenia não são completamente compreendidos; no entanto, é provável que seja o resultado de eventos multifatoriais, incluindo uma capacidade regenerativa comprometida [2,3], inflamação crônica [4,5], aumento dos níveis de estresse oxidativo [5,6] e disfunções mitocondriais [7].
A regeneração muscular é um processo coordenado no qual as células satélites, o compartimento de células-tronco do músculo esquelético, são ativadas para manter e preservar a estrutura e a função do tecido após o dano [8].
A primeira fase do processo regenerativo é caracterizada por necrose das miofibras devido a um influxo de cálcio extracelular levando à proteólise das miofibrilas [9,10]. Este evento resulta na ativação de uma resposta inflamatória específica que leva à invasão sequencial do músculo por diferentes populações de células inflamatórias [11]. A resposta inflamatória é seguida pela ativação das células satélites e pela formação de fibras regeneradoras, que são morfologicamente distinguíveis pelos característicos núcleos centralizados [12,13]. No entanto, um programa regenerativo eficiente pode ser severamente afetado no caso de envelhecimento ou condições patológicas, e a formação de tecido fibrótico estendido pode contribuir para o comprometimento funcional [14,15]. Além disso, alterações nas citocinas inflamatórias, fatores de crescimento e sinais metabólicos no ambiente do músculo esquelético envelhecido podem afetar a proliferação de células satélites e/ou ativação após lesão das miofibras [16]. Sabe-se, de fato, que o envelhecimento está associado a um estado inflamatório de baixo grau, condição conhecida como "inflammaging", caracterizada por níveis plasmáticos ligeiramente aumentados de mediadores pró-inflamatórios, como fator de necrose tumoral (TNF) e interleucina 6 ( IL-6), e a consequente ativação da via NF-κB [13]. Curiosamente, as concentrações de proteína NF-κB foram quatro vezes maiores em músculos humanos idosos em comparação com os de jovens; esse aumento de concentração é acompanhado por déficits de sinalização anabólica, resultando na perda de músculos envelhecidos [17].
Níveis aumentados de inflamação estão intimamente relacionados ao dano oxidativo, e ambos estão envolvidos na redução relacionada à idade na massa e força muscular. O estresse oxidativo é caracterizado por altos níveis de espécies reativas de oxigênio (ROS) e/ou espécies reativas de nitrogênio (RNS). Pode ser causada pela diminuição da capacidade antioxidante devido ao comprometimento da atividade da enzima antioxidante e/ou pelo aumento da produção de ROS [18]. Além disso, níveis elevados de ROS e RNS também podem resultar como consequência da disfunção mitocondrial causada por mutações, deleções e danos no DNA mitocondrial relacionados à idade [19-21]. As ROS parecem funcionar como segundos mensageiros para o TNF- no músculo esquelético, ativando o NF-κB direta ou indiretamente [14].

No músculo esquelético, o coativador de transcrição peroxissoma ativado por proliferador-gama coativador-1 (PGC-1 ) é uma das moléculas mais importantes envolvidas na estimulação da biogênese mitocondrial, a regulação da homeostase oxidante-antioxidante celular , a supressão da inflamação crônica e o catabolismo muscular [22]. PGC -1 interage com receptores nucleares e fatores de transcrição para ativar a transcrição de seus genes-alvo, e sua atividade responde a múltiplos estímulos, incluindo íons de cálcio, ROS, insulina, hormônios da tireoide e estrogênio, hipóxia, demanda de ATP e citocinas [ 23]. Em particular, a regulação PGC-1 da biogênese mitocondrial envolve sua interação com vários fatores de transcrição nuclear, incluindo membros da família PPAR, fator respiratório nuclear (NRF)-1 e NRF-2, fator intensificador de miócitos{ {10}} (MEF2) e proteína forkhead box O (FOXO) 1 [24,25]. A ativação do PGC-1 do NRF-1, 2 promove a expressão de numerosas proteínas mitocondriais codificadas no núcleo, que estimulam diretamente a replicação e a transcrição do DNA mitocondrial [23,26,27]. Além disso, o PGC-1 , em cooperação com o fator de transcrição MEF2C, também pode influenciar os perfis fenotípicos das miofibras, favorecendo a mudança do MHC rápido para o MHC lento mais resistente durante o envelhecimento [28,29].
Na última década, várias estratégias, como atividade física e nutrição, foram propostas para potencialmente atenuar a deterioração do músculo esquelético durante o envelhecimento. De fato, foi relatado que o exercício físico atenua a sarcopenia e previne o acúmulo de gordura corporal e a inflamação [30-32]. Além disso, intervenções dietéticas visando a ingestão de proteínas ou antioxidantes podem ter um efeito positivo no aumento da massa e força muscular [33]. Sabe-se que a perda de massa e função muscular que ocorre nos idosos envolve uma diminuição da ingestão alimentar, o que resulta na atenuação da síntese de proteínas musculares em comparação com pessoas mais jovens [34]. Consequentemente, a nutrição, em particular a suplementação de aminoácidos, pode representar uma abordagem importante para melhorar a resposta anabólica do músculo durante o envelhecimento [35-39].
A taurina é um aminoácido semi-essencial derivado da cisteína altamente expresso em tecidos de mamíferos. No músculo esquelético, onde seus níveis diminuem com o envelhecimento, desempenha um papel importante como molécula antioxidante e anti-inflamatória [40,41]. Uma vez que o músculo esquelético depletado de taurina exibe várias anormalidades em sua morfologia e função, semelhantes às que ocorrem durante o envelhecimento [42], a suplementação de taurina pode representar uma estratégia promissora para neutralizar os efeitos negativos do envelhecimento no músculo esquelético.
Aqui, demonstramos que a administração intraperitoneal de taurina neutraliza o impacto associado ao envelhecimento da regeneração do músculo esquelético, reduzindo a inflamação. Além disso, nossos resultados suportam o papel da taurina como uma molécula antioxidante capaz de melhorar o microambiente muscular, neutralizando processos degenerativos e favorecendo a homeostase tecidual durante o envelhecimento.
2. Materiais e métodos
2.1. Animais e Tratamentos
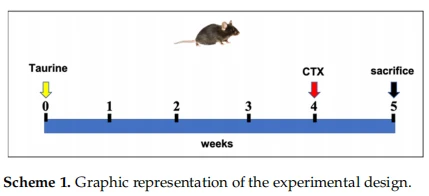
Camundongos C57BL6J machos jovens (8–10 semanas) e idosos (18–20 meses) foram alojados em uma instalação com um ciclo claro/escuro de 12 h em temperatura e umidade constantes. Os camundongos foram autorizados a se alimentar e beber ad libitum. Os camundongos foram tratados de acordo com as diretrizes do Comitê de Ética da Universidade Católica do Sagrado Coração—Roma (Autorização No. 150/2017-PR Ministério da Saúde Italiano) em conformidade com os regulamentos nacionais sobre a proteção dos animais usados para fins científicos (decreto italiano nº 26 de 4 de março de 2014, reconhecendo a Diretiva Europeia 2010/63/EU). A taurina foi preparada em solução salina e administrada por meio de injeções intraperitoneais em doses de 100 mg/kg/dia por cinco semanas consecutivas [43-45] (Esquema 1). Esta dose foi escolhida com base em dados publicados mostrando efeitos antioxidantes in vivo em modelos de camundongos [46,47]. Os camundongos de controle receberam apenas solução salina. Antes da indução do dano do AT com injeções de cardiotoxina (CTX), os animais foram anestesiados por meio de injeção intraperitoneal de uma mistura de cetamina 70 mg/kg e medetomidina 1 mg/kg, diluída em solução fisiológica. Uma lesão nos músculos tibial anterior esquerdo (TA) dos camundongos controle e tratados com taurina foi realizada ao longo de todo o comprimento do músculo com quatro injeções de CTX (5 µL de 10 µM CTX por local) [48,49]. O TA do lado direito foi usado como contraparte de controle. Os animais foram sacrificados por deslocamento cervical após anestesia conforme descrito acima. Para as análises histológicas, os músculos TA foram embebidos no composto OCT (Miles, Elkhart, IN, USA) e congelados imediatamente em isopentano a -80 graus .
2.2. Análise Histológica e Histoquímica
Os músculos TA dos camundongos velhos foram seccionados em uma espessura de 10 µm por um criostato Leica. Para a análise histológica, os cortes foram corados com hematoxilina e eosina (H&E) usando métodos padrão [50]. A coloração de esterase foi realizada usando um kit de coloração de esterase inespecífica (Bio-Optica, Milão, Itália) seguindo as instruções do fabricante.
2.3. Análise Morfométrica
A coloração de hematoxilina e eosina e esterase foram realizadas em seções das amostras de TA. Para a avaliação morfométrica do tamanho da fibra, a análise foi realizada em 4 campos escolhidos aleatoriamente de imagens de alta ampliação de cortes musculares inteiros para cada condição. O número de animais examinados foi de 3 a 4 para cada tratamento. As fotomicrografias das fibras foram analisadas usando ImageJ, software Scion Image (versão beta 4.0.2; Scion Corporation, Frederick, MD, EUA, acessado em 2 de maio de 2022) para avaliar a área da seção transversal das fibras . As fibras em regeneração se destacaram pela presença de núcleos centrais.
2.4. Análise de imunofluorescência
Seções congeladas foram fixadas em paraformaldeído a 4 por cento por 10 min em temperatura ambiente, lavadas com PBS e permeabilizadas por uma solução contendo 1 por cento de albumina de soro bovino (BSA) (Sigma-Aldrich, St. Louis, MO, EUA , #A9418), Triton-X a 0,2% em solução salina tamponada com fosfato (PBS) por 30 min em temperatura ambiente e bloqueado com soro de burro a 10% (Sigma-Aldrich, St. Louis, MO, EUA, #D9663) por 1 h em temperatura ambiente. Os cortes foram incubados durante a noite a 4 ◦C com anticorpos primários na diluição apropriada. Os seguintes anticorpos foram usados: MHC lento (Sigma-Aldrich, St. Louis, MO, EUA, #M8421, 1:500) e 4-HNE (Alpha Diagnostics International, San Antonio, TX, #HNE{{20 }}S, 1:500). Após três lavagens em PBS, os cortes foram incubados por 60 min em temperatura ambiente com anticorpos secundários específicos. Em particular, foram usados os seguintes: AlexaFluor594-anti-mouse conjugado 1:1000 (Molecular Probes, Eugene, OR, USA, #A21203) e AlexaFluor488-conjugated anti-ratinho 1:1000 (Molecular Probes, Eugene, OR, USA, #A21206) em PBS contendo 1,5% de soro de burro. As seções foram montadas com ProLong™ Gold Antifade Mountant com DAPI (Thermo Fisher Scientific, Waltham, MA, EUA, #P36935) e examinadas com um Leica SP5 Laser confocal. A quantificação das mudanças no sinal 4-HNE nos grupos experimentais foi realizada por análises densitométricas. Após a subtração de fundo, os sinais associados à fibra 4-HNE foram quantificados delineando manualmente fibras individuais e medindo a intensidade de fluorescência associada à fibra com o software ImageJ. A relação F/A define a fluorescência média de fibras individuais (F) normalizada para a área total da seção transversal da fibra (A). A quantificação foi realizada em 50 fibras por grupo (n=3 camundongos por grupo).
2.5. Extração de Proteína e Análise de Western Blot
Os músculos TA obtidos dos camundongos foram dissecados, picados e homogeneizados com tampão de lise (Cell Signaling Technology, Danvers, MA, EUA, #9803) contendo fluoreto de fenilmetilsulfonil (PMSF) (Cell Signaling Technology, Danvers, MA, USA, #8553) e um coquetel completo de inibidores de protease (Cell Signaling Technology, Danvers, MA, USA, #5872). O Bradford Protein Assay (Bio-Rad Laboratories Inc., Hercules, CA, EUA) e Varioskan™ LUX controlado por Thermo Scientific™ SkanIt™, para Leitores de Microplacas (Thermo Fisher Scientific, Waltham, MA, EUA, Software versão 4.1) foram usados para determinar uma quantidade igual de proteínas de acordo com as instruções do fabricante. As proteínas foram separadas por SDS/PAGE (Mini-PROTEAN® TGX™ Precast Protein Gels ou Mini-PROTEAN TGX stain-free precast PAGE gels; Bio-Rad Laboratories Inc., Hercules, CA, EUA) e transferidas para uma membrana de nitrocelulose ( Trans-Blot® Turbo™ Mini Nitrocelulose Transfer Packs #1704158; Bio-Rad Laboratories Inc., Hercules, CA, EUA). A ligação inespecífica foi bloqueada em solução salina tamponada com Tris (TBS) (Bio-Rad Laboratories Inc., Hercules, CA, EUA) suplementada com 0,1 por cento de Tween-20 e contendo 5 por cento de leite em pó desnatado (Bio-Rad Laboratories Inc. , Hercules, CA, USA #1706404) por 1 hora em temperatura ambiente. Os anticorpos primários utilizados foram: anti-SOD monoclonal de camundongo-1 (1:500, Santa Cruz Biotechnology Dallas, Texas 75220 EUA, sc-17767); anti-fosfo-mTOR monoclonal de coelho (1:1000, #2971, Cell Signaling Technology, Danvers, MA, EUA); anti-mTOR monoclonal de coelho (1:1000, #2972, Cell Signaling Technology, Danvers, MA, EUA); anti-MHC monoclonal de camundongo (1:500, Sigma-Aldrich, #M8421); anti-miosina monoclonal de camundongo (Skeletal, Fast) (1:500, Sigma-Aldrich, St. Louis, MO, EUA, #M4276); anti-fosfo-NF-κB p65 monoclonal de coelho (Ser468) (1:1000, #3039, Cell Signaling Technology, Danvers, MA, EUA); anti-NF-κB p65 monoclonal de coelho (1:250, #3034, Cell Signaling Technology, Danvers, MA, EUA); anti-G6PD monoclonal de camundongo (1:300, Santa Cruz Biotechnology Dallas, Texas 75220 EUA, sc-373887) e anti-GP91[phox] monoclonal de camundongo. Os blots foram então incubados com os seguintes anticorpos secundários da Bio-Rad Laboratories: Goat anti-Rabbit IgG (1:3000, HRP Conjugate, Bio-Rad Laboratories Inc., Hercules, CA, USA, #1706515) e Goat anti-Mouse IgG (1:3000, HRP Conjugate, Bio-Rad Laboratories Inc., Hercules, CA, EUA, nº 1706516) por 1 h em temperatura ambiente. Os sinais foram capturados pelo ChemiDoc™ Imaging System (Bio-Rad Laboratories, Hercules, CA, EUA) usando um sistema de quimioluminescência aprimorado (SuperSignal Chemoluminescent Substrate, Thermo Fisher Scientific Inc. Waltham, MA, EUA). As análises densitométricas foram realizadas usando Image Lab™ Touch, Software versão 5.2.1 (Bio-Rad Laboratories Inc., Hercules, CA, EUA).

2.6. Análise de PCR em tempo real
Os músculos TA obtidos dos camundongos foram dissecados e a extração de RNA total foi realizada com um lisador de tecido (QIAGEN) em TriReagent (Invitrogen, Carlsbad, CA, EUA) de acordo com o protocolo do fabricante. O cDNA de fita dupla foi sintetizado com o kit QuantiTect Reverse Transcription (QIAGEN Srl, Milão, Itália). As análises de RNA mensageiro foram realizadas em um ABI PRISM 7500 SDS (Applied Biosystems, Waltham, MA, EUA) usando ensaios TaqMan específicos (Applied Biosystems, Waltham, MA, EUA). Especificamente, foram utilizados os seguintes ensaios: GPX1: mm_00656767_g1; MEF2C: mm_00600423_m1; PGC1- : mm_01280835_m1; SOD1: mm_01344233_m1; e CAT: mm_00437992_m1. A quantificação relativa foi realizada usando o controle endógeno Hprt1 (Applied Biosystems, Waltham, MA, EUA). A PCR em tempo real foi realizada usando preparações de RNA de três a cinco animais diferentes para cada grupo, conforme especificado nas Figuras. A expressão relativa foi calculada usando o método 2−∆∆Ct.
2.7. Análise estatística
Múltiplas comparações estatísticas entre os grupos foram realizadas por ANOVA de uma via. Onde indicado nas legendas, foi usado o teste de soma de postos de Mann-Whitney ou o teste t de Student não pareado. Cada barra representa a média ± SEM (erro padrão da média).
3. Resultados
3.1. A administração de taurina neutraliza o impacto associado ao envelhecimento da regeneração do músculo esquelético
Para investigar o efeito da administração de taurina na regeneração do músculo esquelético, induzimos danos usando injeções de CTX nos músculos TA do controle (veículo) e camundongos velhos tratados com taurina. As análises morfológicas e morfométricas revelaram que na ausência de lesão (Figura 1A, B: painéis a, b e Figura 1C), as fibras musculares dos camundongos tratados com taurina exibiram uma área transversal ligeiramente aumentada em comparação com os controles. Uma vez que a homeostase da proteína no músculo esquelético se baseia em um equilíbrio entre a síntese de proteína e a degradação de proteína, analisamos os níveis de fosfo-mTOR, como o principal regulador da síntese de proteína, e Atrogin-1, como um dos principais reguladores envolvidos no catabolismo de proteínas através do sistema ubiquitina-proteassoma [40]. Nossos resultados mostraram que os níveis de fosfo-mTOR foram significativamente aumentados nos extratos musculares dos camundongos tratados com taurina, enquanto nenhuma modulação significativa de Atrogina -1 (FBXO32) foi revelada nesta condição (Figura 1D-F). Esses dados demonstram o envolvimento da via dependente de mTOR no efeito da taurina no aumento observado na fibra muscular esquelética CSA. Além disso, após 1 semana de lesão muscular, o corte transversal das fibras nos camundongos tratados com veículo (CTX) revelou degeneração com inflamação aguda concomitante e necrose, bem como a presença de pequenas fibras em regeneração, identificadas por núcleos centrais ( Figura 1G, H: painel c). Por outro lado, maiores miofibras em regeneração e menos fibras necróticas (Figura 1G, H: painel d) apareceram nos músculos lesionados dos camundongos velhos tratados com taurina, juntamente com menos infiltrados. A análise desses resultados, mostrados nos diagramas da Figura 1I, revelou que a administração de taurina afetou a distribuição do tamanho das fibras, favorecendo o acúmulo de fibras regeneradoras maiores em comparação com o músculo lesionado controle. Em conclusão, estes resultados sugerem que a taurina pode estimular o processo regenerativo exercendo um papel protetor na manutenção da integridade das fibras musculares esqueléticas e favorecendo a aceleração da formação de novas miofibras.

3.2. Suplementação de Taurina Modula a Resposta Inflamatória no Músculo Envelhecido
O envelhecimento é acompanhado por um estado inflamatório sistêmico crônico de baixo grau [51] que pode ser responsável pela capacidade regenerativa prejudicada do músculo esquelético [52]. Para verificar se a resposta regenerativa aumentada observada nos músculos lesionados dos camundongos tratados com taurina estava associada a uma modulação do processo inflamatório, examinamos a presença de macrófagos por coloração com esterase. As Figuras 2A, B mostram que, como resultado das injeções de CTX, todas as seções musculares exibiram um número aumentado de células inflamatórias mononucleadas em comparação com as contrapartes não lesadas; no entanto, o alto número de macrófagos positivos para esterase presentes no músculo lesionado antigo (Figura 2A: painel c e Figura 2B) foi significativamente atenuado na presença de suplementação de taurina (Figura 2A: painel d e Figura 2B). O efeito da taurina na diminuição da extensão da inflamação durante o processo regenerativo também foi avaliado analisando os níveis da isoforma fosforilada do fator de transcrição NF-kB, pois sabe-se que sua ativação no músculo esquelético leva à degradação de proteínas musculares específicas , induz inflamação e fibrose e bloqueia a regeneração de miofibras após lesão [53-55]. Como mostrado na Figura 2C, D, o fosfo-NF-kB foi detectável em níveis muito baixos tanto no controle quanto nos músculos não lesionados tratados com taurina, enquanto os altos níveis de fosfo-NF-kB detectados nos músculos lesionados por CTX diminuíram drasticamente no músculos de camundongos velhos tratados com taurina. Os níveis totais de NF-kB e a relação entre fosfo-NF-kB e NF-kB foram analisados e mostraram ter aumentado, embora não significativamente, com dano induzido por CTX, enquanto a taurina preveniu esse efeito (Figura 2C, E, F) . Esses resultados demonstram que a taurina atenua o estado inflamatório no músculo lesionado, diminuindo os níveis de NF-kB total e fosfo-NF-kB.

3.3. A taurina modula a expressão de PGC1- e MEF2C nos músculos TA de camundongos idosos
Para investigar melhor os mecanismos moleculares envolvidos no efeito positivo da taurina na homeostase do músculo esquelético, avaliamos o papel do coativador transcricional PGC-1 . PGC-1 é um fator importante na promoção de um ambiente anti-inflamatório no músculo. Além disso, foi relatado que o PGC-1 pode melhorar não apenas a função muscular, mas também a morfologia e a integridade das miofibras, implicando um papel potencial para o PGC-1 no reparo e regeneração da fibra. Em cooperação com o fator de transcrição MEF2C, o PGC-1 demonstrou regular a determinação do tipo de fibra muscular esquelética, promovendo a troca de fibras glicolíticas por fibras oxidativas mais resistentes [56,57].

Assim, usando uma análise de RT-PCR, avaliamos os níveis de expressão de mRNA de PGC-1 e MEF2C nos extratos de TA de camundongos jovens, velhos e velhos tratados com taurina para determinar se a administração de taurina induziu alterações transcricionais dos supracitados fatores em comparação com o que foi observado na sua ausência. Camundongos jovens em condições saudáveis foram usados para avaliar os níveis de expressão desses fatores. Conforme mostrado na Figura 3A, B, na ausência de taurina, não foram observadas alterações nos níveis de PGC-1 e apenas uma ligeira diminuição nos níveis de MEF2C nos extratos de camundongos velhos em comparação com os jovens, enquanto os níveis de mRNA de ambas as moléculas foram significativamente aumentadas nos camundongos velhos submetidos a injeções intraperitoneais de taurina. Foi demonstrado que as fibras oxidativas de contração lenta do tipo I (expressando a isoforma lenta da cadeia pesada da miosina, MHC lento) são mais resistentes a danos e a uma variedade de condições atróficas do que as fibras glicolíticas de contração rápida do tipo IIb [29]. Em diversas patologias musculares, incluindo a sarcopenia, o fenótipo do músculo mais rápido é mais severamente comprometido quando comparado com os músculos de contração lenta, e a maior sensibilidade das fibras do tipo IIb pode ser devido ao seu menor conteúdo de PGC-1 em comparação com aquele das fibras oxidativas [58,59]. Aqui, mostramos pela análise de Western blot que os músculos TA dos camundongos velhos expressaram níveis muito baixos da isoforma do MHC lento em comparação com os extratos de músculos derivados de jovens; no entanto, a expressão de MHC lento aumentou nos extratos musculares dos camundongos tratados com taurina (Figura 3C, D). Além disso, a análise de Western blot da isoforma do MHC rápido revelou que, na presença de taurina, sua expressão foi significativamente aumentada em comparação com o que foi observado nos extratos de TA derivados de camundongos velhos que não receberam administração de taurina (Figura 3F) . Consistentemente, os níveis reduzidos de MHC (MF20) detectados nos extratos musculares de camundongos velhos, em comparação com os dos camundongos jovens, foram aumentados com a administração de taurina. Esses resultados sugerem que o efeito positivo da taurina na homeostase do músculo esquelético de camundongos idosos pode ser mediado pela estimulação da via PGC1- /MEF2C, favorecendo um possível deslocamento metabólico das miofibras em direção ao fenótipo oxidativo e preservando o aspecto mais fibras glicolíticas sensíveis.

【Para mais informações:george.deng@wecistanche.com / WhatApp:86 13632399501】