O acoplamento de oscilação lenta do fuso se correlaciona com o desempenho da memória e mudanças de conectividade em uma rede hipocampal após o sono
Aug 24, 2023
Abstrato
Depois que as experiências são codificadas, foram propostas reativações pós-codificação durante o sono para mediar a consolidação da memória de longo prazo. O acoplamento de oscilação lenta do fuso durante o sono NREM é um mecanismo candidato através do qual um diálogo cortical do hipocampo pode fortalecer um engrama de memória recém-formado. Aqui, investigamos o papel do acoplamento de oscilação lenta e de fuso rápido e fuso lento na consolidação da memória espacial em humanos com uma tarefa de labirinto aquático virtual envolvendo estratégias de aprendizagem alocêntricas e egocêntricas. Além disso, analisamos como a conectividade funcional do estado de repouso evoluiu através da aprendizagem, consolidação e recuperação desta tarefa usando uma abordagem baseada em dados. Nossos resultados mostram mudanças de conectividade relacionadas à tarefa na rede de controle executivo, na rede de modo padrão e na rede do hipocampo no repouso pós-tarefa. A rede do hipocampo poderia ainda ser dividida em duas sub-redes, das quais apenas uma apresentava modulação pelo sono. A diminuição da conectividade funcional nesta sub-rede foi associada ao maior poder de acoplamento de oscilação lenta do fuso, que também foi relacionado ao melhor desempenho da memória no teste. No geral, este estudo contribui para uma compreensão mais holística das redes funcionais do estado de repouso e dos mecanismos durante o sono associados à consolidação da memória espacial.

Experiência Cistanche - Melhorar a Memória
PALAVRAS-CHAVE
consolidação de memória, redes em estado de repouso, sono, oscilações lentas, fusos
1|INTRODUÇÃO
A teoria da consolidação de sistemas é uma das estruturas mais amplamente estudadas de formação de memória de longo prazo. A teoria postula que os engramas lábeis no cérebro, codificados durante a aprendizagem, são fortalecidos por meio de reativações repetidas. Com o tempo, este processo pode levar a uma representação mais estável a longo prazo – um traço de memória consolidado (Squire et al., 2015). Acredita-se que as reativações do engrama ocorram predominantemente durante o sono, mas também podem ser observadas durante o repouso tranquilo. Um potencial mecanismo-chave subjacente à consolidação de sistemas constitui a coordenação hierárquica de três tipos de eventos durante o sono de movimento ocular não rápido (NREM): (1) oscilações lentas corticais de alta amplitude, (2) fusos acionados por aliados talâmicos e (3) ondulações agudas do hipocampo. Acredita-se que a orquestração dessas oscilações impulsionadas pelo aumento e diminuição de oscilações lentas no córtex pré-frontal (Helfrich et al., 2019) defina janelas de tempo ideais para a transferência de informações do hipocampo para o córtex (Sirota et al., 2003) e para o cérebro. processos de consolidação sináptica abrangentes subjacentes à consolidação de sistemas (Genzel, 2020; Genzel, Kroes, et al., 2014; Navarro-Lobato & Genzel, 2020). Em humanos, dois tipos de fusos foram consistentemente identificados: fusos lentos (~9-12,5 Hz) e fusos rápidos (~12,5-16 Hz), que são mais proeminentes nas regiões frontal e centro-parietal, respectivamente (Adamczyk et al. , 2015; Anderer et al., 2001). Ambos os tipos de fuso são acoplados para oscilações lentas. Embora os fusos rápidos sejam frequentemente aninhados no estado ascendente excitável da oscilação lenta, os fusos lentos normalmente ocorrem durante o período de transição para o estado descendente inibitório da oscilação lenta (Molle et al., 2011). Os fusos rápidos têm sido implicados como facilitadores da transferência de informações entre o hipocampo e o neocórtex, pois coincidem com as ondulações das ondas agudas do hipocampo (Staresina et al., 2015). Os fusos lentos, que são principalmente precedidos por ondulações, podem estar relacionados a uma ligação cruzada cortical de informações transferidas e à modulação do circuito pré-frontal para formar uma representação de memória neocortical (Molle et al., 2011). No entanto, apenas em estudos humanos existe uma divisão consistente entre fusos lentos e rápidos. Uma vez que esta subdivisão raramente é feita em pesquisas com animais, faltam evidências concretas para uma função diferente de cada tipo de fuso. A influência destes dois tipos de fuso no comportamento é ainda menos conclusiva. Descobertas recentes de EEG mostraram que uma maior quantidade e maior consistência no acoplamento de fusos rápidos e oscilações lentas estão relacionadas ao aumento do desempenho da memória declarativa (Hahn et al., 2020; Muehlroth et al., 2019; Niknazar et al., 2015) . O reforço experimental da coordenação entre ondulações de ondas agudas do hipocampo, oscilações lentas e fusos frontais em roedores - potencialmente o análogo dos fusos lentos humanos - também resultou no aumento do desempenho da memória (Maigret et al., 2016). Em contraste, descobertas preliminares sobre o acoplamento fuso-oscilação lenta em humanos apontam para diminuição do desempenho da memória declarativa com aumento do acoplamento fuso-oscilação lenta ou nenhum efeito (Barakat et al., 2011; Muehlroth et al., 2019). Assim, é crucial desvendar a relevância comportamental de ambos os tipos de fusos na consolidação da memória. Dada a importância do sono e do hipocampo na consolidação offline, levantou-se a hipótese de que o sono desempenha um papel distinto na consolidação de memórias dependentes do hipocampo, em contraste com as memórias "não dependentes do hipocampo". Esses dois tipos de memórias podem ser investigados utilizando paradigmas de navegação espacial. A navegação num ambiente envolve a utilização de diferentes estratégias de navegação, nomeadamente estratégias alocêntricas e egocêntricas (para uma revisão Ekstrom et al., 2017). Em um referencial alocêntrico, o navegador pode inferir sua posição com base nas posições relativas de pontos de referência estáveis. Sugere-se que a aprendizagem espacial alocêntrica dependa fortemente do hipocampo, pois requer um mapa cognitivo espacial das posições de referência (O'Keefe & Nadel, 1978). Em contraste, o quadro de referência egocêntrico muda continuamente com o movimento do navegador. Durante a aprendizagem espacial egocêntrica, o navegador precisa acompanhar a distância percorrida e a direção para a qual o corpo estriado dorsal foi identificado como uma estrutura crítica (McDonald & White, 1994). Pode-se assim propor que, num contexto espacial, os mecanismos de consolidação diferem entre condições de treino alocêntricas e egocêntricas e influenciam o desempenho da memória em conformidade. No entanto, evidências recentes apontam para o envolvimento do hipocampo na consolidação durante o sono, mesmo para memórias anteriormente consideradas não dependentes do hipocampo (Sawangjit et al., 2018; Schapiro et al., 2019), e alterações de rede funcional semelhantes após o sono em áreas alocêntricas e egocêntricas. treinamento de truques (Samanta et al., 2021). Portanto, permanece uma questão em aberto sobre como a informação espacial dos dois referenciais é consolidada durante o sono e como esses mecanismos influenciam o desempenho da memória. Embora muitos trabalhos tenham se concentrado no papel do sono na consolidação da memória dos sistemas, estudos tanto em roedores (Davidson et al., 2009; Diba & Buzsáki, 2007) quanto em humanos (Schuck & Niv, 2019; Tambini & Davachi, 2013) demonstraram processos de consolidação em todo o sistema durante os períodos de descanso acordado imediatamente após a aprendizagem. Semelhante à consolidação dependente do sono, as representações de eventos são reativadas espontaneamente na rede hipocampo-tálamocortical durante o repouso pós-codificação (para uma revisão detalhada, ver Tambini & Davachi, 2019). Acredita-se que nós importantes dessas reativações incorporem a rede do hipocampo centrada no córtex temporal medial e no córtex retroesplenial (van Buuren et al., 2019), bem como interações entre hubs da rede de modo padrão (Lin et al., 2017) e redes relevantes para tarefas (por exemplo, a rede de controle executivo; Sneve et al., 2017). Demonstrou-se que níveis maiores de conectividade funcional em estado de repouso entre áreas específicas dos estímulos e o hipocampo predizem a capacidade futura de recuperar uma memória (Tambini et al., 2010). Além disso, a conectividade funcional imediatamente após a aprendizagem, bem como a quantidade de reativação do hipocampo previram a retenção subsequente da memória durante a noite, sugerindo uma relação complementar entre a reativação em repouso acordado e a consolidação posterior durante o sono (Schapiro et al., 2018). Embora a maioria dos estudos anteriores examinem separadamente um tipo de período pós-codificação (isto é, descanso ou sono), estudos que investigam os processos de consolidação em ambos os períodos são necessários para obter uma compreensão holística dos paralelos entre os mecanismos de consolidação durante estes estados cerebrais distintos. O presente estudo visa, portanto, fornecer medidas dentro do estudo em diferentes estados cerebrais pós-codificação e mostrar sua relação com o desempenho da memória em uma tarefa de navegação espacial. Nosso estudo dá continuidade às nossas investigações sobre o efeito do sono nas representações da memória alocêntrica e egocêntrica em humanos e ratos (Samanta et al., 2021). Os participantes realizaram um análogo humano do labirinto aquático (Morris, 1981), um paradigma validado para estudar diferentes aspectos da navegação espacial (Müller et al., 2018; Schoenfeld et al., 2017). Enquanto Samanta et al. (2021) focado em dados de fMRI de tarefa durante a aprendizagem e recuperação, aqui nos concentramos em dados de fMRI em estado de repouso e de EEG de sono. Assim, a conectividade funcional em estado de repouso em redes relevantes foi avaliada antes e depois da aprendizagem e recuperação da tarefa de memória na qual os participantes se engajaram em navegação espacial alocêntrica ou egocêntrica. O EEG foi utilizado entre as duas sessões de tarefa para medir os processos de consolidação relacionados ao sono NREM (isto é, propriedades de fuso e oscilação lenta e seu acoplamento). Adotamos uma abordagem baseada em dados (Ribeiro de Paula et al., 2017) para investigar a evolução da conectividade funcional em estado de repouso através da aprendizagem espacial, consolidação e recuperação de memória. Redes em estado de repouso foram selecionadas com base nos resultados obtidos por Samanta et al. (2021), incluindo a rede de modo padrão, a rede do hipocampo e a rede de controle executivo correta. Para estabelecer uma relação tríade entre sono, estado de repouso e comportamento, correlacionamos parâmetros de fuso e oscilação lenta, mudanças na conectividade funcional do estado de repouso e medidas de desempenho da tarefa de memória espacial. Samanta et al. (2021) encontraram mudanças semelhantes em todo o cérebro relacionadas ao sono na recuperação da memória, para treinamento alocêntrico e egocêntrico. Especificamente, as ativações aumentaram na rede de controle executivo e diminuíram na rede do modo padrão, desde a aprendizagem até a recuperação, se os sujeitos dormissem após a aprendizagem. Portanto, esperávamos observar mudanças semelhantes nessas duas redes em repouso. Os processos de consolidação em todo o cérebro também devem ser observáveis para a rede hipocampal que coordena a consolidação durante o sono e em repouso. Nossa hipótese é que o acoplamento de oscilação lenta do fuso está positivamente associado a mudanças na rede do hipocampo e ao desempenho da memória. Esses achados não devem diferir entre as condições de memória, uma vez que Samanta et al. (2021) não observaram diferença entre treinamento alocêntrico e egocêntrico. Na verdade, nossos resultados demonstram que as redes de controle executivo e de modo padrão mudam nas direções opostas hipotéticas, antes do desempenho pós-tarefa. Além disso, identificamos duas sub-redes dentro da rede do hipocampo. A sub-rede primária era independente da condição de sono e aumentava a conectividade funcional antes do desempenho pós-tarefa e após o intervalo. A conectividade na segunda sub-rede diminuiu durante o intervalo apenas para os participantes que tiraram uma soneca. Finalmente, o poder de acoplamento da oscilação lenta do fuso foi positivamente associado ao desempenho da memória e à diminuição da conectividade na segunda sub-rede do hipocampo dependente do sono. Todos os efeitos foram iguais para o treinamento alocêntrico e egocêntrico. Nossas descobertas sugerem que as ativações do estado de repouso podem ser divididas em alterações relacionadas à tarefa e relacionadas à consolidação, que são independentes ou dependentes do sono. Apenas as mudanças dependentes do sono estão associadas ao acoplamento de oscilação lenta do fuso, que contribui igualmente para o desempenho da memória para aprendizagem alocêntrica e egocêntrica.
benefícios da cistanche para homens - doença anti-Alzheimer
Clique aqui para ver os produtos Cistanche para melhorar a memória e prevenir a doença de Alzheimer
【Peça mais】 E-mail:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
2|MÉTODOS E MATERIAIS
2.1|Participantes
Setenta e sete participantes do sexo masculino, destros e neurologicamente saudáveis (faixa etária: 18-30 anos, média=24) foram recrutados para o estudo. Apenas participantes do sexo masculino foram selecionados porque a amostra compreende uma subpopulação de um corpo translacional maior de pesquisa usando apenas roedores machos (Samanta et al., 2021). O estudo foi aprovado pelo comitê de ética local (CMO Arnhem-Nijmegen, Radboud University Medical Center) sob a aprovação geral de ética ("Imaging Human Cognition", CMO 2014/288), e o experimento foi conduzido em conformidade com estas diretrizes. O recrutamento ocorreu através do Sistema de Participação em Pesquisa Radboud. Os participantes foram selecionados e excluídos com base em (1) uso de medicamentos para dormir, (2) cochilos regulares e (3) envolvimento em atividades profissionais de jogos. Antes do início do experimento, todos os participantes forneceram consentimento informado por escrito e receberam compensação financeira pela sua participação. No total, quatorze participantes foram excluídos da análise após a aquisição dos dados. Oito sujeitos foram excluídos do experimento devido a problemas técnicos durante o aprendizado ou recuperação: para cinco participantes, o joystick foi calibrado incorretamente e, para os três restantes, houve problemas técnicos, incluindo falha abrupta do programa do ambiente de tarefas durante a varredura. Três indivíduos dormiram menos de 30 minutos no teste de sono ou na sessão de controle. Seus escores z estavam mais de 2,5*σ distantes da média amostral do tempo real de sono. O tempo real de sono foi calculado para cada sujeito como o tempo total de sono (TST), excluindo a vigília após o início do sono (WASO). Para outros três indivíduos, foi identificado um grande deslocamento da imagem devido ao movimento da cabeça durante os exames de fMRI. A quantidade de deslocamento na série de imagens foi avaliada com um índice de qualidade (QI) usando a Equação (1):
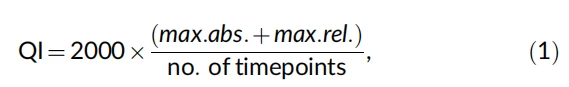
where max. abs. is the maximum absolute displacement of a given volume with respect to a reference time point (i.e. middle volume in the time series) and max. rel. represents the maximum relative displacement at a given volume with respect to the subsequent time point. The two measures account for gradual as well as abrupt changes in head position. The cut-off for the exclusion of participants was set to a QI >16.4 (Ribeiro de Paula et al., 2017). No total, 63 sujeitos foram considerados como amostra final (faixa etária: 18 a 30 anos, média=23,3).
2.2|Procedimento experimental
Com um projeto misto fatorial completo 2 2, testamos processos de consolidação de todo o sistema de um paradigma de memória espacial. Durante as varreduras de fMRI, os participantes se envolveram em aprendizagem espacial alo ou egocêntrica e recuperação de memória em um análogo humano previamente validado do labirinto aquático (Müller et al., 2018; Schoenfeld et al., 2017). Imediatamente antes e depois das sessões de aprendizagem e recuperação, a conectividade funcional foi avaliada com fMRI em estado de repouso. Isso equivale a um total de quatro sessões de fMRI em estado de repouso de 9 minutos cada. Entre a aprendizagem espacial e a recuperação da memória, o EEG do sono foi usado para medir o sono. Na condição experimental, os participantes foram orientados a dormir por 90 minutos, enquanto o grupo controle assistia a um filme pelo mesmo período. Aproximadamente 2 semanas após o experimento, os participantes na condição de sono completaram uma sessão de controle do sono por 90 minutos, que não seguiu uma experiência de aprendizagem.

Suplemento Cistanche perto de mim - Melhorando a Memória
2.3|A tarefa do labirinto aquático virtual
A tarefa do labirinto aquático virtual é uma adaptação do labirinto aquático de ratos, um método estabelecido para testar habilidades espaciais em roedores (Morris, 1981).
Este paradigma análogo para humanos é compatível com o ambiente do scanner de ressonância magnética (Schoenfeld et al., 2017). Os participantes foram instruídos a navegar por uma ilha virtual com o objetivo de encontrar uma caixa de tesouro. Usamos dois cenários diferentes neste paradigma: uma “ilha oculta” e uma “ilha com pistas”. A ilha escondida era cercada por quatro marcos (ou seja, uma ponte, um veleiro, uma turbina eólica e um farol; ver Figura S1). Uma caixa de tesouro escondida na ilha marcava o local alvo. A caixa estava localizada em uma pequena reentrância na superfície da ilha virtual e, portanto, só era visível nas proximidades. Em contraste, a ilha indicada não tinha nenhum ponto de referência para orientação, exceto uma bandeira próxima a uma caixa de tesouro que era visível à distância. A posição desta bandeira junto com a caixa do tesouro mudou a cada tentativa. A sequência de tarefas consistiu em oito blocos alternados de ilhas sinalizadas e ocultas, resultando em um total de 16 tentativas. Em cada teste, os participantes foram livres para se movimentar pela ilha em seu próprio ritmo, usando um joystick. Quando o local alvo próximo à caixa do tesouro fosse alcançado, os participantes poderiam encerrar o teste pressionando um botão no joystick. Houve um intervalo de 15-s entre o final de uma tentativa e o início da próxima, durante o qual os participantes puderam se virar na ilha e se orientar. Os participantes encontraram pela primeira vez a ilha indicada onde deveriam encontrar a bandeira visível. Esta ilha foi usada para controlar o processamento perceptual e motor para isolar os efeitos da memória em análises posteriores. Para o encontro com a ilha escondida, os participantes foram alocados aleatoriamente em qualquer uma das condições de aprendizagem – alocêntrica ou egocêntrica. O grupo alocêntrico começou em um local diferente da ilha em cada tentativa e teria que se reorientar a cada vez para encontrar o local alvo, promovendo assim o uso da navegação local. No grupo egocêntrico, eles teriam o mesmo local de início em todas as tentativas e, portanto, poderiam contar com um movimento fixo repetido para chegar ao local alvo, além das dicas visíveis, permitindo-lhes usar ambas as estratégias de navegação. Em geral, os participantes desconheciam essas duas condições. Para os testes de aprendizagem, o principal objetivo dos participantes em ambas as condições era aprender a localização da caixa alvo nos oito testes de ilhas ocultas. Para os testes de recuperação, a configuração da ilha permaneceu a mesma com uma modificação – a caixa do tesouro foi removida da ilha escondida e os participantes foram instruídos a marcar o local, tanto quanto sabiam, onde recordavam a caixa a ser localizada.
2.4|Aquisição de dados
2.4.1|Gravações polissonográficas
Os registros polissonográficos foram obtidos com taxa de amostragem de 500 Hz (BrainAmp, Brain Products, Gilching, Alemanha) durante os cochilos de 90 minutos. Trinta e dois eletrodos de couro cabeludo (sistema internacional 10-20 EEG) foram montados, incluindo Fz, F3, F4, Cz, C3, C4, Pz, P3, P4, Oz, O1, O2, e referenciados à mastoide esquerda. Além disso, foram registrados movimentos oculares horizontais e verticais (EOG), eletromiograma (EMG) no queixo e eletrocardiograma (ECG). As gravações começaram logo após o apagamento da luz. Após o experimento, a pontuação do sono foi realizada por um experimentador cego para as condições usando a caixa de ferramentas SpiSOP (www.spisop.org; RRID: SCR_015673). De acordo com as regras de pontuação da Academia Americana de Medicina do Sono (AASM), os estágios 1 e 2 do sono, sono de ondas lentas, sono REM, despertares e movimentos corporais foram pontuados visualmente em períodos de 30 segundos com base em EOG, EMG e nos seguintes canais —F3, F4, C3, C4, O1, O2.
2.4.2|Aquisição de FMRI
As séries temporais de FMRI foram adquiridas usando um scanner 3T somente de cabeça (Prisma 3T, Siemens, Erlangen, Alemanha). Setecentas imagens ponderadas em T2* foram adquiridas com uma sequência de imagem multibanda gradiente-eco eco-planar (fator multibanda=8, 64 cortes axiais, tempo de repetição de volume [TR]=1000 ms, tempo de eco [TE ]=39 ms, 52 ângulos de inversão, espessura de corte=2,4 mm; campo de visão (FOV) 210 mm; tamanho do voxel 2 mm isotrópico). As imagens anatômicas foram adquiridas usando uma sequência MP-RAGE ponderada em T1- (192 cortes sagitais, volume TR=2300 ms, TE=3,03 ms, ângulo de rotação 8, espessura do corte, 1 mm ; FOV, 256 mm; tamanho do voxel 1 1 1 mm). Todos os dados estão disponíveis no Repositório Donders di. pode. DSC_3013066.01_875.
2,5|Processamento de dados
2.5.1|Pré-processamento de EEG do sono
Os dados foram pré-processados em Matlab R2020b (Mathworks Inc., Sherborn, Massachusetts) usando a caixa de ferramentas Sleeptrip (www.sleeptrip. org; RRID: SCR_017318). Todos os canais de EEG foram re-referenciados às mastoides médias (A1 e A2) e os dados foram filtrados passa-faixa entre 0,3 e 35 Hz (filtro de fase zero Butterworth de 4ª ordem). Em geral, apenas filtros de fase zero foram aplicados (isto é, direção direta e reversa). Canais EEG ruins foram rejeitados visualmente com base em seus espectros de potência. Para os canais restantes, foram detectados artefatos nas longas janelas de 30-. Os segmentos que foram identificados visualmente como movimento corporal foram marcados para posterior exclusão. Para identificar ainda mais os segmentos que se desviaram fortemente da distribuição de amplitude geral observada, as diferenças médias de amplitude para cada segmento foram padronizadas em z dentro de cada canal. Foram excluídos segmentos com az > 5 em qualquer um dos canais (Muehlroth et al., 2019). O TST foi calculado como o tempo gasto nos estágios 1, 2, SWS e sono REM. WASO foi definido como o tempo em que os participantes ficaram acordados entre o início do sono e o despertar final.

Efeitos da erva cistanche-doença de Alzheimer anti
2.5.2|Detecção de fuso
Os fusos foram detectados usando um algoritmo automatizado implementado em Sleeptrip com base em publicações anteriores (Weber et al., 2020) e o algoritmo "off" implementado em Python, versão 3.8 (Donoghue et al. , 2020). Picos de potência putativos nas bandas de frequência do fuso lento (9–12,5 Hz) e do fuso rápido (12,5–16 Hz) foram detectados visualmente nas épocas NREM (isto é, N2 e N3). Antes da inspeção dos espectros de potência, o componente aperiódico 1/f foi removido do sinal ajustando uma função Lorentziana. Para cada participante, os picos do fuso lento foram identificados manualmente na média dos três canais frontais (Fz, F3, F4; Sessão de Teste de Sono: 10,25 Hz ± 0,1, média ± SEM ; Sessão de Controle do Sono: 10,07 Hz ± 0,14, média ± SEM) e picos de fusos rápidos na média dos três canais centrais (Cz, C3, C4; Sessão de Teste de Sono: 13,44 Hz ± 0,09, média ± SEM; Sessão de Controle do Sono: 13,44 Hz ± 0,06, média ± SEM). Para verificar os picos de frequência definidos visualmente, ajustamos iterativamente Gaussianos aos componentes periódicos de potência com fooof (ver Figura S2, por exemplo, espectros). Caso houvesse diferença nos rótulos manuais e nos picos gaussianos ajustados, os espectros de potência foram revisados. Este método foi utilizado para evitar a introdução de eventos espúrios de fuso (Ujma et al., 2015). Em seguida, o sinal de cada canal foi filtrado passa-banda (± 1,5 Hz, corte de 3 dB, filtro de fase zero Butterworth de 4ª ordem) em torno dos picos de frequência individuais identificados. A representação da raiz quadrada média (RMS) do sinal foi calculada em cada ponto amostral e suavizada usando um filtro de média móvel em uma janela deslizante de 200 ms. Um fuso potencial foi marcado se a amplitude do sinal RMS suavizado excedeu sua média em 1,5 SD do sinal filtrado por 0,5–3 s. Os mínimos e máximos locais no sinal do fuso filtrado foram marcados como picos e vales. O maior vale foi definido como o horário de pico do fuso. A amplitude do fuso foi definida pela diferença de potencial entre o maior vale e o maior pico. A frequência individual de um fuso de concreto foi determinada somando o número de todas as depressões e picos e dividindo pelo dobro da duração do respectivo fuso. Os fusos com limites mais próximos de 0,25 s foram eventualmente mesclados.
2.5.3|Detecção de oscilação lenta
A detecção de oscilações lentas nos eletrodos frontais também foi baseada em um algoritmo automatizado implementado no Sleeptrip e validado em outro lugar (Ngo et al., 2013). Para todas as épocas NREM, os dados de EEG pré-processados foram filtrados passa-baixo a 4 Hz (filtro de fase zero Butterworth de 6ª ordem). Todo o sinal foi então dividido em meias ondas negativas e positivas que foram separadas por cruzamentos de zero. Uma oscilação lenta potencial foi definida como uma meia onda negativa seguida por uma meia onda positiva em uma faixa de frequência entre 0,5 e 1 Hz. A amplitude e a frequência de oscilação lenta foram calculadas com a mesma abordagem usada para fusos. Supostas oscilações lentas excedendo um vale de 1,25 vezes o vale médio de todas as supostas oscilações lentas, bem como uma amplitude de 1,25 vezes a amplitude média de todas as potenciais oscilações lentas foram aceitas para análise posterior.
2.5.4|Pré-processamento de fMRI em estado de repouso
Os arquivos DICOM de ressonância magnética foram inseridos em um pipeline automático no GraphICA (BraiNet — Brain Imaging Solution Inc. — Sarnia, Ontário, Canadá). Imagens anatômicas e funcionais foram pré-processadas utilizando FSL 6.03. As etapas de pré-processamento das imagens anatômicas ponderadas em T1- incluíram correção de campo de polarização (RF/B1-correção de heterogeneidade), extração cerebral, segmentação de tipo de tecido (CSF, GM, WM) e estrutura subcortical segmentação. Nos dados funcionais, realizamos remoção do crânio, correção de movimento, correção de tempo de corte, suavização espacial, que é calculada com base no tamanho do voxel, teto (1,5 * tamanho do voxel), co-registro, remoção automática de artefatos de movimento baseada em ICA, passa-alto filtragem e regressão de incômodo (WM e CSF). Os dados não foram normalizados para um espaço de referência, pois as características do espaço natural do cérebro devem ser preservadas na análise seguinte.
2.5.5|Análise de regressão dupla
A regressão dupla foi usada para identificar mapas espaciais específicos do assunto usando 11 máscaras de rede em estado de repouso: Auditivo, Rede de Modo Padrão, Controle Executivo Esquerdo, Controle Executivo Direito, Hipocampo, Linguagem, Saliência, Sensorimotor, Visual Lateral, Mídia Visual e Visual Occipital. A intensidade dos mapas espaciais dos componentes foi expressa em unidades de variação percentual do sinal em relação à média.
2.5.6|Parcelamento regional
A imagem ponderada T{{0}} de cada sujeito foi segmentada automaticamente com um pipeline implementado no Freesurfer 7 (v7.1.0, http://surfer.nmr.mgh. harvard.edu/). O parcelamento adicional foi realizado com GraphICA usando um procedimento de modelo Markov Random Field ponderado por gradiente descrito em (Schaefer et al., 2018). Este modelo de parcelamento contém três termos concorrentes que compensam as propriedades ideais da segmentação final: um termo de similaridade global para agrupar localizações cerebrais com intensidades de imagem semelhantes, um termo de gradiente local para detectar mudanças abruptas de conectividade funcional entre localizações cerebrais vizinhas e um termo de conexão espacial para garantir a conectividade espacial dentro das parcelas. O procedimento rendeu 832 regiões cerebrais parceladas que foram incluídas como nós de rede para análises posteriores.
2.5.7|Construção de rede funcional e limite
Usando o GraphICA, cada curso de tempo nodal de fMRI foi correlacionado com o curso de tempo de IC para as três redes em estado de repouso separadamente. Após o co-registro de cada uma das redes funcionais de estado de repouso para o sujeito no espaço nativo, um valor z médio foi calculado calculando a média dos valores do mapa escalar do voxel pertencente a cada uma das 832 ROIs. Os coeficientes de correlação padronizados z resultantes descrevem o carregamento de cada curso de tempo nodal na respectiva rede de estado de repouso. Para remover valores z espúrios ou fracos, por exemplo, devido ao ruído, as cargas foram limitadas com uma abordagem de modelagem de mistura baseada em dados no nível de sujeito único (Bielczyk et al., 2018). Além disso, as redes com limites foram combinadas com modelos de rede fornecidos pelo GraphICA que foram derivados de 200 controles íntegros. Somente os nós encontrados nos modelos foram considerados para análise posterior (ou seja, nós da rede do hipocampo=74, nós da rede de modo padrão=171, nós da rede de controle executivo direito=164).
2.6|Análise estatística
2.6.1|Análise de EEG do sono
As análises estatísticas dos dados do EEG do sono foram realizadas usando Matlab R2020b (Mathworks Inc., Sherborn, Massachusetts) com a caixa de ferramentas de código aberto Fieldtrip (Oostenveld et al., 2011) e a caixa de ferramentas CircStats (Berens, 2009). A análise limita-se aos canais Fz para oscilações lentas e fusos lentos e Cz para fusos rápidos. Nem todas as variáveis do sono utilizadas em nossa análise seguiram uma distribuição normal. Todas as comparações dentro do grupo das propriedades descritivas do sono e de oscilação entre a sessão de sono após a aprendizagem e a sessão de controle do sono foram testadas usando testes não paramétricos de postos sinalizados de Wilcoxon para amostras dependentes. As comparações entre grupos das variáveis do sono na condição alocêntrica versus egocêntrica foram calculadas com testes não paramétricos de Mann-Whitney U para amostras independentes. Para estes testes foram reportados valores medianos e quartis das variáveis. Um valor p<.05 was viewed as statistically significant.
2.6.2|Relação temporal entre oscilações lentas detectadas e fusos
A coordenação de oscilações lentas e fusos foi avaliada para o sono NREM, uma vez que o acoplamento fuso-oscilação lenta demonstrou ser estável durante o estágio 2 e o sono de ondas lentas (Cox et al., 2017), embora o tipo de oscilação lenta é diferente (complexos K vs. ondas Delta). A relação temporal geral entre oscilação lenta e eventos de fuso foi calculada determinando a proporção de fusos cujo centro (isto é, vale máximo) ocorreu em um intervalo de ± 1,2 s em torno do vale das oscilações lentas identificadas, e a quantidade de oscilações lentas com fusos cujo centro ocorreu dentro de ± 1,2 s em torno do respectivo vale da oscilação. A janela de tempo de ± 1,2 s foi escolhida para cobrir todo um ciclo de oscilação lenta (0,5–1 Hz, ou seja, 1–2 s). Sempre que duas janelas de tempo de oscilação lenta se sobrepunham, aquela que estava mais distante do centro do fuso era removida. O tempo exato de oscilação lenta e eventos de fuso foi visualizado por histogramas de tempo peri-evento (PETHs) (Figura 2b) de centros de fuso rápido e lento (eventos de teste) ocorrendo dentro de um intervalo de tempo de ± 1,2 s em torno de cada vale de oscilação lenta (alvo evento). As probabilidades de ocorrência do evento semente foram somadas em intervalos de 100 ms e transformadas em porcentagens. Para testar o padrão temporal dos PETHs, implementamos um procedimento de randomização embaralhando aleatoriamente a ordem dos compartimentos PETH 1000 vezes. Os substitutos resultantes foram calculados em média para cada indivíduo e testados em relação aos PETHs originais usando testes t de amostras dependentes. O controle para comparações múltiplas foi obtido através de testes de permutação baseados em cluster com 5.000 permutações (Maris & Oostenveld, 2007).
2.6.3|Acoplamento de fase bloqueado por evento
Para análises de frequência cruzada bloqueadas por eventos (Helfrich et al., 2018), foram selecionados ensaios de eventos de oscilação lenta livres de artefatos sobre o canal Fz (±3 s em torno do vale máximo de oscilação lenta), e banda -pass filtrado na faixa de frequência de oscilação lenta (00,3–1,25 Hz). Após aplicar uma transformada de Hilbert, extraímos o ângulo de fase instantâneo do sinal analítico. Os mesmos ensaios também foram filtrados passa-banda entre 9 e 12,5 Hz (componente de fusos lentos) e entre 12,5 e 16 Hz (componente de fusos rápidos) para calcular o envelope de amplitude do sinal analítico. Consideramos apenas o intervalo de tempo de 2 a 2 s para evitar artefatos nas bordas do filtro. Para cada assunto, canal e época, detectamos agora a amplitude máxima do fuso e o correspondente ângulo de fase de oscilação lenta. Os testes de Rayleigh foram calculados para testar a distribuição de fases por sujeito em relação à uniformidade. A direção circular média e o comprimento vetorial resultante em todos os eventos NREM foram determinados. O PPC foi usado como um estimador imparcial da consistência na relação de fase entre fusos e oscilações lentas (Vinck et al., 2012) com base nos espectros de Fourier acionados pela calha do fuso em uma janela de tempo de 3,5 a +3,5 s (passos de 100 ms) e uma faixa de frequência de oscilação lenta de 0,3 a 3 Hz.

Cistanche de ervas chinesas
2.6.4|Análise tempo-frequência
Para descrever melhor a relação temporal entre fusos e oscilações lentas, usamos novamente os testes de eventos de oscilação lenta calculados anteriormente (6-s segmentos). Esses testes foram combinados com um segmento de tempo livre de artefatos escolhido aleatoriamente de 6 s durante o mesmo estágio do sono que a respectiva oscilação lenta usada como testes de linha de base. Para a análise tempo-frequência de tentativas com e sem oscilações lentas, utilizamos superconjuntos (Moca et al., 2021). Superlets são compostos por uma série de wavelets de Morlet com a mesma frequência central, mas com largura de banda cada vez mais restrita e com resolução de tempo-frequência mais alta do que as abordagens estabelecidas. Especificamente, aplicamos uma transformada superlet adaptativa fracionária (FASLT) aos dados pré-processados de oscilação lenta e ensaios de linha de base entre 5 Hz e 20 Hz em passos de 0,25 Hz, com uma ordem wavelet inicial de 3 e um intervalo de ordem entre 5 e 15 ( Barzan et al., 2021). As representações tempo-frequência de ensaios de eventos de oscilação lenta e ensaios de controle foram então comparadas para cada sujeito usando testes t de amostras independentes. Os mapas t resultantes refletem o aumento/diminuição na faixa de frequência do fuso rápido e lento para ensaios com oscilações lentas, em comparação com ensaios sem. Para calcular os contrastes dentro do sujeito, extraímos 100 conjuntos aleatórios de testes de linha de base e de oscilação lenta, mantendo a proporção do estágio 2 para os testes de sono de ondas lentas. Os mapas T para todos esses conjuntos de testes aleatórios foram calculados para cada sujeito. separadamente para cada condição de memória, os mapas t foram testados contra zero usando um teste de permutação baseado em cluster com 5.000 permutações em uma janela de tempo de 1,2 a 1,2 s.
2.6.5|Análise fMRI em estado de repouso
Os dados de fMRI das três redes de estado de repouso foram analisados no RStudio 1.4.1103 (RStudio, Inc., Boston, Massachusetts). Todas as análises foram realizadas para as três redes de estado de repouso pré-selecionadas separadamente (ou seja, rede hipocampal, rede de modo padrão, rede de controle executivo direito) e foram baseadas nos valores z nodais obtidos por IC que descrevem o padrão de conectividade no funcional redes de estado de repouso. Exploramos três abordagens diferentes para analisar os dados, incluindo análise da Teoria dos Grafos, matrizes de distância euclidiana e uma decomposição de valores singulares (SVD), das quais o SVD era mais adequado para o conjunto de dados atual. O SVD foi realizado nos valores z brutos para capturar a organização original das redes de estado de repouso com mais precisão. Os valores z limitados formaram uma matriz de dados m n (m=número de participantes em 4 sessões; n=número de nós). Especificamente, um SVD para matrizes esparsas foi escolhido para redução de dimensionalidade, uma vez que a matriz de dados com limite continha principalmente valores zero. Foram extraídos dois modos principais por rede que, juntos, explicaram 15% a 20% da variação nos dados. Cada modo pode ser entendido como uma sub-rede funcional de estado de repouso baseada em variância (ver Filmes S1 a S4). Como resultado do SVD, obtivemos uma reconstrução média de baixa classificação das redes como uma aproximação de classificação r que descreve a distribuição espacial da respectiva sub-rede, usando a Equação (2):
onde A é a matriz de dados original que é aproximada por U contendo r vetores singulares à esquerda, S contendo r valores singulares e V contendo r vetores singulares à direita. Em preparação para testes estatísticos, o respectivo vetor singular esquerdo (um, i) foi escalonado por seu valor singular (si, i), onde i é a i-ésima linha/coluna da matriz. O resultado (um, I si, i) é um vetor coluna que representa as pontuações dos participantes para todas as sessões na i-ésima sub-rede. Esses valores podem ser interpretados como a força de conectividade da sub-rede funcional selecionada para todos os participantes, entre sessões e condições. Para cada uma das duas sub-redes, as pontuações obtidas dos participantes foram analisadas como variáveis dependentes usando um modelo linear de efeitos mistos. Os preditores do modelo incluíram condição de sono (sono, vigília), sessão (1–4 ou pré/pós-pausa, pré/pós-tarefa) e condição de memória (alocêntrica, egocêntrica) como efeitos fixos. Os participantes foram modelados como efeitos aleatórios para as quatro sessões de estado de repouso. O Critério de Informação de Akaike (Akaike, 1973), o Critério de Informação Bayesiano (Schwarz, 1978) e a probabilidade logarítmica foram usados para avaliar o ajuste do modelo.
3|RESULTADOS
3.1|Desenho do estudo e desempenho da memória
O presente estudo utilizou um paradigma de 1-dias para testar a consolidação de uma tarefa de memória espacial (Figura 1a). Durante exames de fMRI, os participantes realizaram aprendizagem espacial alo ou egocêntrica e recuperação de memória em um análogo virtual previamente validado do labirinto aquático para humanos (Müller et al., 2018; Schoenfeld et al., 2017). Uma descrição detalhada da tarefa pode ser encontrada na primeira publicação deste conjunto de dados (Samanta et al., 2021). Resumidamente, os participantes navegaram livremente em uma ilha virtual usando um joystick para chegar a um local de destino fixo. Na sessão de aprendizagem, o local foi indicado por uma caixa de tesouro escondida. No entanto, durante a recuperação, os participantes foram instruídos a marcar a localização da caixa do tesouro, tanto quanto soubessem, sem que a caixa estivesse presente. As condições alocêntricas e egocêntricas diferiram de tal forma que os participantes designados aleatoriamente começaram cada tentativa na mesma posição inicial ou em mudança (Figura 1b). O desempenho da memória foi medido como a latência para atingir o local de destino a partir do ponto inicial. Na recuperação, os participantes geralmente tiveram melhor desempenho na condição egocêntrica do que na condição alocêntrica, e o principal efeito do sono no desempenho da memória foi significativo (Figura 1c; Tabela 1; ANOVA bidirecional com alo/ego F1,62=16 0,78, p < 0,001 e dormir/despertar F1,62=30,84, p=0,05). Imediatamente antes e depois das sessões de aprendizagem e recuperação, a conectividade funcional foi avaliada com fMRI em estado de repouso. Isso equivale a um total de quatro sessões de fMRI em estado de repouso de 9 minutos cada. Entre a aprendizagem espacial e a recuperação da memória, a polissonografia foi utilizada para medir a arquitetura do sono (Tabela S1). Na condição experimental, os participantes dormiram cerca de 90 minutos (93,48 ± 1,77, média ± SEM), enquanto o grupo controle assistiu a um filme neutro pelo mesmo período de tempo. Aproximadamente 2 semanas após o experimento, os participantes na condição de sono completaram uma sessão de controle do sono por cerca de 90 minutos (103,30 ± 2,66, média ± SEM), que não seguiu imediatamente uma experiência de aprendizagem espacial. A sequência das duas sessões de sono não foi contrabalançada para manter os sujeitos cegos para as condições experimentais na sessão de teste. Usando um projeto de tarefa semelhante, Genzel, Bäurle, et al. (2014) e Genzel et al., (2012) obtiveram durações de cochilo comparáveis. No entanto, aqui, os participantes dormiram significativamente mais tempo na sessão de controle do sono do que na sessão de teste de sono (Wilcoxon Sign-Rank Test, z = 2.68, p=.01). Este efeito de sessão sugere habituação ao laboratório do sono. A diferença em relação a estudos anteriores pode ser devida à utilização de um ambiente laboratorial diferente, para Genzel, Bäurle, et al. (2014); Genzel et al., 2012) o laboratório do sono (Instituto Max Planck de Psiquiatria) foi designado como tal, enquanto o laboratório do sono do Instituto Donders no laboratório de EEG (e, portanto, menos “caseiro”).
3.2|Propriedades do sono na sessão de teste e controle
Demonstrou-se que os mecanismos espaço-temporais durante o sono NREM consolidam experiências codificadas durante a vigília anterior (Maigret et al., 2016). No nível sistêmico, acredita-se que as experiências sejam reativadas na rede hipocampo-tálamo-cortical durante o sono para formar representações de longo prazo dessas experiências. Várias oscilações envolvidas na consolidação da memória podem coordenar a comunicação entre essas estruturas cerebrais (Genzel, 2020; Genzel, Bäurle, et al., 2014). Estávamos interessados em oscilações lentas, bem como em fusos lentos (9–12,5 Hz) e fusos rápidos (12,5–16 Hz) durante o sono NREM, que podem desempenhar um papel distinto no processo de consolidação da memória (Genzel & Robertson, 2015) . Em linha com a topografia relatada anteriormente dessas oscilações do sono no EEG humano (Adamczyk et al., 2015), concentramos nossas análises em oscilações lentas frontais e fusos lentos (ou seja, canal Fz) e fusos rápidos centrais (ou seja, canal Cz; veja a Figura S3 para topografia de acoplamento). Para capturar influências específicas da experiência de aprendizagem espacial na arquitetura do sono da sessão de teste de sono, comparamos as descrições do sono, bem como as propriedades de fuso e oscilação lenta (ver Tabela S1) entre o teste de sono e as sessões de controle. Descobrimos que os participantes dormiram significativamente mais tempo na sessão de controle em comparação com a sessão de teste. Em comparação com a sessão de teste, a duração do fuso rápido também foi significativamente maior na sessão de controle (Wilcoxon Sign-Rank Test, z = 2,91, p < 0,01). Avaliamos ainda se a diferença significativa no TST entre as sessões de teste e controle poderia prever essa diferença na duração do fuso rápido, controlando o WASO. No entanto, não houve efeito significativo do TST nas diferenças de amplitude do fuso rápido entre as sessões de sono (regressão linear múltipla, TST:=0 0,53, p=0,61). O aumento da amplitude do fuso rápido, semelhante ao aumento do TST, pode ser devido a um efeito de habituação descontrolada do laboratório do sono. No entanto, levantamos a hipótese de que a relação temporal das oscilações do sono é crucial para a consolidação da memória. Nesse aspecto, não observamos diferenças entre as sessões, como será apresentado a seguir.
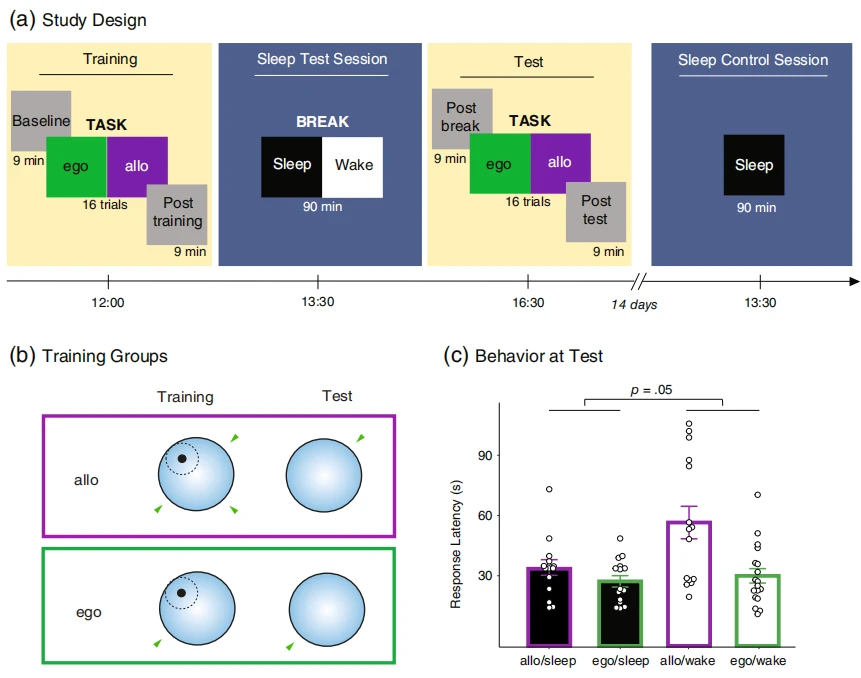
FIGURA 1
3.3|Acoplamento fuso-oscilação lenta na sessão de teste e controle
O acoplamento entre ondulações de ondas acentuadas, fusos e oscilações lentas pode definir uma janela de tempo crucial para consolidar uma experiência de aprendizagem (Genzel, Kroes, et al., 2014). Portanto, nos concentramos na relação temporal entre fusos e oscilações lentas para explorar ainda mais a diferença na microarquitetura do sono entre testes de sono e sessões de controle. Primeiro, calculamos o número de vales máximos dos fusos (em%) que ocorrem em um ciclo (intervalo de ± 1,2 s) em torno do centro das oscilações lentas identificadas (Figura 2a). Em ambas as sessões, detectamos um número semelhante de fusos rápidos acoplados a oscilações lentas (Wilcoxon Sign-Rank Test, z = 1 0,14, p=0,26) e fusos lentos acoplados a oscilações lentas (Wilcoxon Teste de classificação de sinais, z {{10}}.75, p=.45). Inversamente, um número aproximadamente igual de oscilações lentas foi acoplado a fusos rápidos (Wilcoxon Sign-Rank Test, z=1.02, p=.31) e fusos lentos (Wilcoxon Sign- Teste de classificação, z {{20}}.10, p=.27) após o aprendizado e no controle do sono. Essas descobertas sugerem que os fusos e as oscilações lentas estão igualmente ligados entre si. Geralmente, detectamos um acoplamento consistente de oscilação lenta do fuso em ambas as sessões de sono, independente da experiência de aprendizagem espacial conduzida imediatamente antes da sessão de teste de sono. A consolidação de memória bem-sucedida pode depender de uma precisão de acoplamento de dezenas ou mesmo centenas de ms (Maigret et al., 2016; Muehlroth et al., 2019). Assim, analisamos a coordenação precisa da oscilação lenta do fuso usando PETHs (Figura 2b). Os PETHs mostram a probabilidade de ocorrência de vales máximos do fuso na janela de tempo de ±1,2 s em torno dos eventos de oscilação lenta dentro de intervalos de tempo de 100-ms. Fusos rápidos co-ocorreram imediatamente antes e no pico de oscilação lenta após o vale de oscilação lenta (permutações baseadas em cluster: sinal. cluster: 400–700 ms no teste, p < 0,001; 500–800 ms no controle, p < 0,001). Por outro lado, fusos lentos coincidiram na transição para e com o vale de oscilação lenta (permutações baseadas em cluster: ambos os clusters de sinal em 300 a 100 ms, p <0,001). A robustez deste efeito foi testada contra uma distribuição de referência obtida embaralhando aleatoriamente os carimbos de data/hora dos vales do fuso. A especificidade temporal do acoplamento fuso-oscilação lenta não diferiu entre as duas sessões de sono, sugerindo novamente a presença de um mecanismo de acoplamento geral independente de uma experiência de aprendizagem espacial. Descobertas anteriores demonstraram maior força de acoplamento fuso-oscilação lenta para jovens em comparação com adultos idosos, e após aprendizagem motora grossa (Cross et al., 2020 [pré-impressão]; Helfrich et al., 2018). Estávamos interessados em elucidar essa consistência nas relações de fase no contexto da aprendizagem espacial. Os gráficos polares na Figura 2b mostram a fase de acoplamento para um sujeito de exemplo e toda a amostra, calculada como a fase de oscilação lenta instantânea (0,3–1,25 Hz) no momento da amplitude máxima do fuso no canal Fz para fusos lentos (9–12,5 Hz). ) e canal Cz para fusos rápidos (12,5–16 Hz). Já no nível de sujeito único, um acoplamento preciso de oscilação lenta-fuso pode ser visto, que é diferente para fusos rápidos e fusos lentos, mas relativamente consistente durante as sessões de sono (ver histogramas polares, Figura 2b). No nível do grupo, a maioria dos fusos rápidos ocorreu entre 5,76 e 6,28 radianos da oscilação lenta (Teste: 6,03 ± 0,56, Controle: 6,07 ± 0,33, média circular ± DP), enquanto os fusos lentos ocorreram entre 1,57 e 2,62 radianos da oscilação lenta (Teste: 1,89 ± 0,79, Controle: 1,87 ± 0,71, média circular ± DP; Figura 2e). Essas descobertas correspondem à coordenação temporal entre fusos e oscilações lentas mostradas nos PETHs. Para estimar a consistência dessas relações de fase calculamos a consistência de fase pareada (PPC; cf. "Métodos e Materiais"). Os valores máximos de PPC não diferiram para fusos rápidos nem para fusos lentos entre as duas sessões de sono (Wilcoxon SignRank Tests, fuso rápido max PPC: z=0 0,451, p=0,65, fuso lento: max PPC: z=0.067, p=.95). Além disso, observamos diferenças individuais perceptíveis no PPC (Figura 2c). Estávamos interessados em saber se essa variabilidade no PPC estava relacionada à qualidade geral do sono do participante (medida com PSQI), que não foi significativa (correlação linear, fusos rápidos: ρ=0.30, p =. 14, fusos lentos: ρ=0 0,15, p=0,46). Em resumo, os fusos foram consistentemente acoplados a oscilações lentas com uma relação de fase específica que suporta descobertas anteriores no domínio do tempo. Os resultados globais do acoplamento apresentados até agora não diferiram nas duas sessões de sono. Conforme descrito anteriormente, observamos um tempo total de sono mais longo no controle do sono do que na sessão de teste de sono, o que pode ter tido efeitos compensatórios na arquitetura do sono, atrás dos quais estava escondida uma diferença no acoplamento. Assim, apresentamos os seguintes resultados apenas para a sessão de teste de sono.
3.4|A potência de oscilação lenta do fuso está associada ao desempenho da memória
Tendo estabelecido a dinâmica geral de tempo e fase do acoplamento de oscilação lenta do fuso ao longo das sessões de sono, prosseguimos com nossa análise com foco nas duas condições de memória (alo vs. ego) durante a sessão de teste de sono, pois o sono pode ter um efeito distinto no alocêntrico. versus memórias espaciais egocêntricas. Possíveis diferenças entre os grupos foram testadas para% de acoplamento e PPC (Figura 2a,f). Nem a quantidade de acoplamento fuso-oscilação lenta nem a consistência na fase fuso-oscilação lenta foram significativamente diferentes entre os grupos (Teste U de Mann-Whitney,% fuso rápido: z = 1 0,12, p =. 27,% de fusos lentos: z=0 0,09, p=0,93; máximo de fusos rápidos PPC: z=1 0,742, p=0,08, máx. Fusos lentos PPC: z=0.083, p=.94). Nós investigamos ainda mais esse padrão comparando a potência oscilatória na faixa de frequência do fuso para segmentos de tempo com e sem oscilações lentas (cf. "Materiais e Métodos"). Os ensaios de oscilação lenta foram construídos marcando ± 1,2 s em torno de oscilações lentas selecionadas aleatoriamente. Nestes ensaios, a potência na faixa de frequência do fuso de fato diferiu significativamente de intervalos selecionados aleatoriamente sem oscilações lentas (para todos os grupos de valores t: p <0,001, Figura 3a). Este efeito esteve igualmente presente em ambas as condições de memória, pois o mapa de diferenças não continha nenhum cluster de modulação significativo (Figura 3a). Para concluir, nenhuma das métricas do acoplamento de oscilação lenta do fuso diferiu entre as condições de memória. Os resultados também estiveram de acordo com a interação não significativa entre tipo de treinamento e sono para a análise comportamental (ver Figura 1c). Assim, decidimos colapsar as duas condições de memória para aumentar o poder estatístico para testes adicionais. Considerando toda a amostra na sessão de teste, primeiro verificamos se a quantidade de acoplamento fuso-oscilação lenta era meramente um subproduto aleatório da ocorrência de eventos de fuso e oscilação lenta. A quantidade de acoplamento obtida diferiu significativamente de uma distribuição de amostragem aleatória em 60% da amostra (Figura 3b, testes de permutação: p <0,05, 1000 iterações por participante). No entanto, para evitar uma perda de poder estatístico e regressão em direção à média, calculamos as modulações de potência espectral durante ensaios de oscilação lenta para toda a amostra (Figura 3c). Descobrimos que as modulações de potência durante os ensaios de oscilação lenta diferiram significativamente dos ensaios de controle correspondentes nas faixas de frequência do fuso e nos intervalos de tempo previamente estabelecidos (ver PETHs, Figura 2b). Em seguida, realizamos análises correlacionais entre diferenças de potência de controle de oscilação lenta (expressas em valores t) e desempenho de memória separadamente para cada ponto de tempo-frequência no respectivo cluster de fuso extraído do mapa t (Figura 3c). Encontramos associações significativas testando uma distribuição de referência inicial das correlações EEG-comportamento. Desta forma, poderíamos identificar grupos de correlação significativos que representam a relação entre o desempenho da memória e um padrão específico de atividade EEG modulada durante o estado ascendente de oscilação lenta (cf. "Materiais e Métodos"). Um cluster de correlação negativa significativa foi identificado para fusos rápidos (cluster p <0,01, max r=0,41, p <0,01, Figura 3c superior). Da mesma forma, identificamos outro cluster de correlação negativa significativa para fusos lentos (cluster p=0,02, max r=0,38, p=0,02, Figura 3c inferior): mais rápido a potência do fuso e a potência do fuso lento durante o período de oscilação lenta foram associadas a um melhor desempenho da memória (ou seja, menor latência de resposta). Esses efeitos foram específicos para a sessão de teste de sono, pois não puderam ser observados para o fuso rápido ou cluster de fuso lento na sessão de controle do sono (Figura S4). Também realizamos esta análise de correlação para os grupos egocêntricos e alocêntricos separadamente (Figura S6). No grupo alocêntrico, nem as modulações de potência de fuso rápido nem de fuso lento se correlacionaram significativamente com o desempenho da memória. Os resultados para o grupo egocêntrico assemelharam-se muito aos observados para toda a amostra. Curiosamente, as modulações de potência de fuso lento mostraram tendências opostas nos dois grupos. Melhor desempenho de memória sugeriu uma associação negativa com modulações de potência de fuso lento para o grupo alocêntrico (cluster=0 0,07, máx. r=0,50, p=0,06, Figura S6 inferior esquerdo). Esta associação foi significativamente positiva para o grupo egocêntrico (cluster p=0,03, máx. r=0,61, p=0,02, Figura S6 canto inferior direito). No entanto, não investigamos mais esta tendência, pois nenhum resultado significativo pôde ser obtido para o grupo alocêntrico. Para concluir, encontramos evidências de uma associação entre a coordenação de oscilações lentas e fusos com desempenho de memória específico para o sono após a aprendizagem, em contraste com uma sessão de sono de controle. As modulações de potência de fuso lento podem ter sido impulsionadas principalmente pelo grupo egocêntrico.
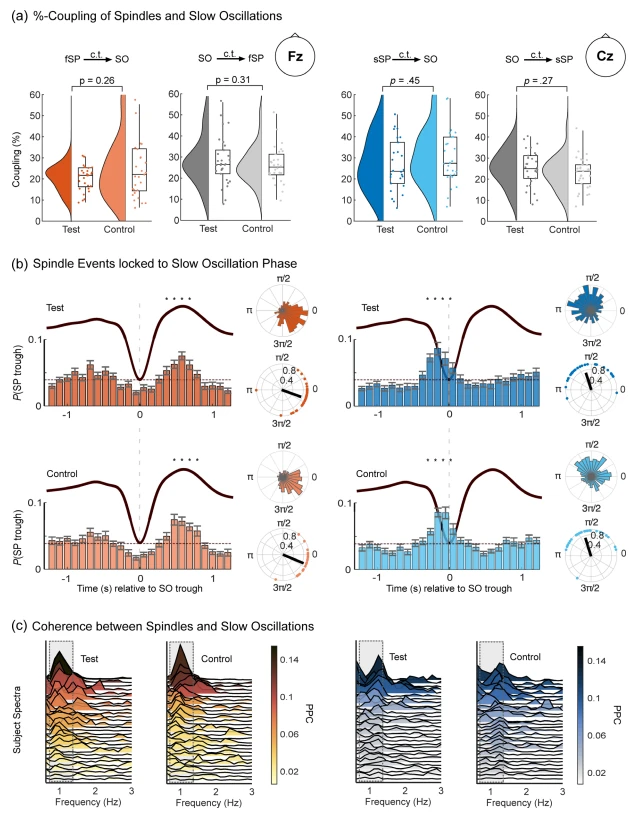
FIGURA 2
3.5|Redes funcionais em estado de repouso mudam entre sessões
Após a análise do EEG do sono, focamos em seguida na conectividade funcional do estado de repouso antes e depois do aprendizado, consolidação e recuperação da tarefa de memória para investigar a consolidação da memória no nível da rede entre os estados de repouso. Para isso, incluímos dados de fMRI das quatro sessões de estado de repouso (ou seja, 1=linha de base, 2=pós-aprendizagem, 3=pós-intervalo, 4=pós-recuperação ) na análise. Estávamos especificamente interessados na rede de controle executivo correta, na rede de modo padrão e na rede do hipocampo. Análises Task-fMRI deste conjunto de dados por Samanta et al. (2021) revelaram que as regiões destas redes mudaram a ativação ao longo do período de consolidação, quando os participantes tiraram uma soneca, mas não quando ficaram acordados. Assim, obtivemos as três redes em estado de repouso com o GraphICA (Ribeiro de Paula et al., 2017), uma ferramenta para análise de redes em estado de repouso. Para fins de redução de dimensionalidade, calculamos os modos primários de variância para cada rede usando um SVD (cf. "Métodos e Materiais"). Por fim, testamos os efeitos da sessão, das condições de sono e das condições de memória na pontuação de cada participante no modo previamente identificado. Com esta abordagem poderíamos determinar (1) quantas sub-redes funcionais estavam contidas em cada rede e (2) como a conectividade funcional das redes mudou para qualquer uma de nossas variáveis experimentais. Para a rede de controle executivo direita, extraímos uma sub-rede primária centrada no sulco parietal inferior direito, no lobo parietal inferior direito e no córtex pré-frontal dorsolateral direito. Nesta sub-rede, encontramos um aumento na conectividade funcional no desempenho da tarefa nas sessões de aprendizagem e recuperação (Figura 4a; modelo linear de efeitos mistos, sono/vigília: t62 = 0.747, p=. 46 alo/ego: t62 = 0.477, p=.64, pré-intervalo/pós-intervalo: t193=1.676, p=.10, pré -tarefa/pós-tarefa: t193=2.808, p=.01). Este aumento foi impulsionado pela mudança de pós-quebra para pós-recuperação (t193=2.468, p=.02). Em contraste, a sub-rede do modo padrão primário com envolvimento principal do córtex cingulado posterior geralmente diminuiu na conectividade do desempenho pré para pós-tarefa e sua conectividade foi geralmente maior para o sono em comparação com a condição de vigília (Figura 4b; efeitos mistos lineares modelo, dormir/vigília: t62 = 2.616, p=.01 allo/ego: t62=0.427, p=.67, pré-pausa/pós -break: t193=1.726, p=.08, pré-tarefa/pós-tarefa: t193 = 2.126, p=.04). A diminuição na conectividade funcional pode ser explicada por uma mudança significativa de pós-quebra para pós-recuperação (t193 = 2.451, p=.017). Porém, o efeito principal do sono não pode ser explicado por nenhuma das manipulações experimentais e pode ter surgido por acaso (Figura S5). Notavelmente, a sub-rede primária do hipocampo, que envolvia principalmente o hipocampo e o córtex para-hipocampal bilateral, mostrou alterações de conectividade semelhantes às da rede de controle executivo direita. Neste caso, não apenas detectamos um aumento pré-para pós-tarefa, mas também um aumento pré-para pós-pausa na conectividade funcional (Figura 4c; modelo linear de efeitos mistos, sono/vigília: t62 = 0. 143, p=0,89 allo/ego: t62=0 0,702, p=0,49, pré-pausa/pós-pausa: t193=3 0,749, p < 0,001, pré-tarefa/pós-tarefa: t193=4 0,535, p < 0,001). Isso foi refletido por uma diferença significativa entre a linha de base e a pós-aprendizagem (t193=30,586, p < 0,001), bem como pós-intervalo e pós-recuperação (t193=30,338, p < 0,001 ). Por último, testamos se a mudança pós-quebra para pós-recuperação na conectividade funcional observada em todas as redes estava associada ao desempenho da memória na recuperação. Este efeito não foi significativo para a sub-rede de controle executivo certa (regressão linear,=0 0,016, p=0,90), a sub-rede de modo padrão (regressão linear,=0 0,655, p=0,43), ou a sub-rede do hipocampo (regressão linear,=0 0,596, p=0,44). No geral, obtivemos consistentemente um efeito pré e pós-tarefa em todas as três sub-redes, com um aumento no controle executivo e na rede do hipocampo e uma diminuição na rede do modo padrão. Apenas a sub-rede do hipocampo aumentou a conectividade pré e pós-intervalo e um efeito principal do sono foi observado para a rede em modo padrão. Como foi demonstrado na nossa análise do sono, o factor memória (alo vs. ego) não teve impacto nas mudanças nas redes do estado de repouso.

FIGURA 3
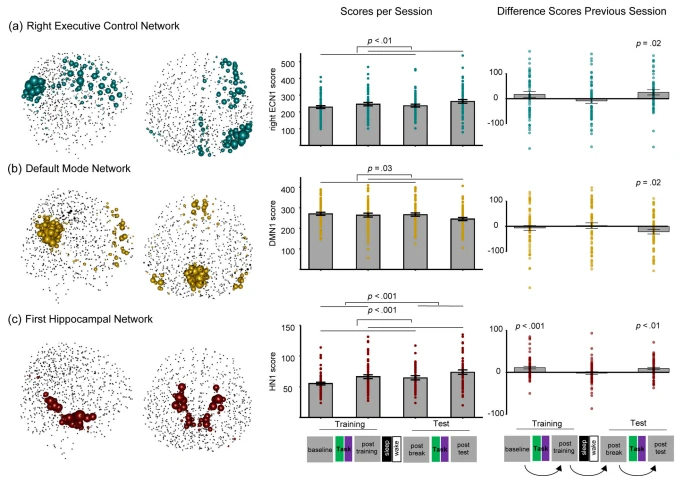
FIGURA 4
3.6|Uma sub-rede hipocampal dependente do sono e acoplamento de oscilação lenta e fuso rápido
A partir da análise realizada por Samanta et al. (2021), é evidente que a ativação do córtex pré-cuneal/retroesplenial diminui após o sono, mas não quando os participantes permaneceram acordados durante o período de consolidação. Da mesma forma, extraímos uma segunda sub-rede funcional da rede do hipocampo centrada no córtex retroesplenial bilateral e na amígdala bilateral (Figura 5a no topo). Identificamos esta sub-rede com base na fatoração SVD, utilizando um critério de espectro de valor singular (cf. "Métodos e Materiais"). Aqui, também investigamos como as sessões, as condições de sono e as condições de memória afetaram as pontuações dos participantes neste segundo modo. Em contraste com os principais efeitos de tarefa e interrupção detectados para as outras redes, observamos agora uma interação entre as condições de sessão e de sono (modelo linear de efeitos mistos, sessão * interação de sono t191=2.086, p {{5} } 0,04). A conectividade funcional da sub-rede pareceu diminuir apenas para os participantes que tiraram uma soneca durante o período de consolidação. Este efeito permaneceu ao comparar uma mudança apenas das sessões pós-aprendizagem para as sessões pós-intervalo (teste t de amostras pareadas, t95=2.3971, p=.02). Assim, também calculamos os valores das diferenças de uma sessão para a seguinte e testamos se estes eram significativamente diferentes de 0. Uma mudança significativa ocorreu apenas para o grupo de sono do pós-treino para o pós-intervalo (t26 = 3.17, p=0,01), isso não foi visto para o grupo de despertar (t38 = 1 0,363, p=0,18). Portanto, estávamos interessados em saber se essa diminuição na conectividade entre as sessões pós-aprendizagem e pós-intervalo na condição de sono estava relacionada ao acoplamento de oscilação lenta do fuso descrito anteriormente (ver Figura 3c). Novamente, análises correlacionais foram realizadas - mas desta vez para diferenças de poder de controle de oscilação lenta (expressas em valores t) e a pontuação de mudança na sub-rede do hipocampo entre as sessões pós-aprendizagem e pós-intervalo. As correlações foram calculadas para cada ponto de frequência de tempo nos respectivos clusters de fuso extraídos do mapa t. Um cluster de correlação negativa significativa foi identificado para fusos rápidos (cluster: p < 0,001, pixel máximo: ρ = 0 0,38, p < 0,01; Figura 5b, topo) e para fusos lentos (cluster: p {{ 39}} 0,02, ρ = 0 0,30, p=0,03): maior potência do fuso durante o estado de oscilação lenta foi associada a uma diminuição maior na conectividade funcional da sub-rede do hipocampo durante o sono . Os clusters se sobrepuseram parcialmente aos clusters de correlação de resposta significativos apresentados anteriormente (ver Figura 3c). Estas descobertas fornecem evidências de uma relação entre a coordenação de oscilações lentas e fusos e a diminuição da conectividade na sub-rede do hipocampo. Eles comparam os resultados obtidos para potência e comportamento do acoplamento de oscilação lenta do fuso. Portanto, nosso objetivo foi estabelecer uma relação tríade entre a pontuação de mudança nesta sub-rede do hipocampo, o acoplamento de oscilação lenta do fuso e o desempenho da memória. Regredimos a pontuação de alteração das redes no desempenho do sono na memória na recuperação. No entanto, a diminuição da conectividade na sub-rede do hipocampo não previu significativamente o comportamento (regressão linear,=0 0,01, p=0,94). Em resumo, encontramos uma sub-rede do hipocampo que diminuiu a conectividade funcional nas sessões de estado de repouso para os participantes que tiraram uma soneca. A conectividade funcional permaneceu praticamente estável para os participantes que permaneceram acordados. Este efeito não diferiu entre as duas condições de memória. A diminuição na conectividade funcional do pós-aprendizado para o pós-pausa foi positivamente relacionada ao acoplamento da oscilação lenta do fuso durante o sono. Portanto, previmos que essa mudança na conectividade seria um correlato da consolidação da memória. No entanto, ao contrário do poder de acoplamento de oscilação lenta do fuso (ver Figura 3c), a diminuição da conectividade dependente do sono na segunda sub-rede do hipocampo não previu o desempenho da memória na recuperação.
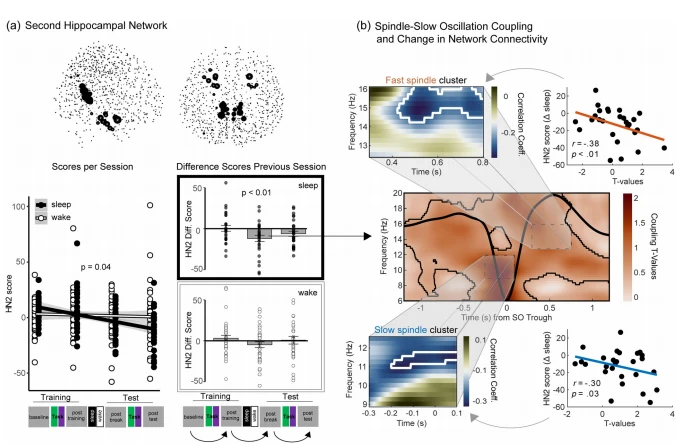
FIGURA 5
4|DISCUSSÃO
Este estudo utilizou dados de fMRI em estado de repouso e EEG do sono para investigar a consolidação da memória espacial durante um cochilo ou no mesmo período em que estive acordado. Os sujeitos aprenderam um local de meta em um labirinto aquático virtual com diferentes locais de partida (grupo alocêntrico) ou com o mesmo local de partida (grupo egocêntrico). A análise do sono-EEG concentrou-se no acoplamento de oscilação lenta do fuso, separando os fusos em subtipos rápidos e lentos. A fMRI em estado de repouso concentrou-se em mudanças na conectividade dentro de redes previamente definidas. Poderíamos mostrar que o acoplamento de oscilação lenta do fuso se correlacionou positivamente com o desempenho da memória após um cochilo e também com uma diminuição na conectividade em uma rede funcional do hipocampo, incluindo o córtex retroesplenial. Essa diminuição na conectividade não foi observada no grupo que ficou acordado. Aumentos na conectividade relacionados a tarefas foram observados na rede de controle executivo e na outra rede do hipocampo, enquanto uma diminuição foi encontrada na rede de modo padrão. Estas mudanças não foram específicas do grupo de sono, mas foram observadas em todos os participantes. Nós replicamos descobertas anteriores de acoplamento de oscilação, mostrando que fusos lentos são aninhados no período de transição da oscilação lenta para o estado descendente, e fusos rápidos freqüentemente ocorrem imediatamente antes e dentro do estado ascendente de oscilação lenta. Não encontramos diferença no acoplamento fuso-oscilação lenta entre grupos de treinamento alocêntrico e egocêntrico. A coordenação precisa entre fusos e oscilações lentas foi consistentemente observada nos domínios de tempo, fase e tempo-frequência. Surpreendentemente, estes efeitos não diferiram entre a sessão de teste do sono, que se seguiu imediatamente à experiência de aprendizagem espacial, e a sessão de controlo do sono, onde não houve aprendizagem explícita previamente. O fato de não termos observado diferença entre as sessões de sono provavelmente se deve a limitações metodológicas do desenho do estudo – o cochilo de controle foi sempre o segundo cochilo – uma vez que também foi observada diferença no tempo total de sono. A análise de fMRI em estado de repouso foi centrada na rede do hipocampo, na rede do modo padrão e na rede de controle executivo direito. Estas redes foram definidas e posteriormente divididas em sub-redes utilizando uma abordagem baseada em dados. Encontramos mudanças em todo o cérebro durante as sessões de estado de repouso que correspondiam às nossas descobertas anteriores na análise da atividade (Samanta et al., 2021). Mudanças na conectividade relacionadas a tarefas na rede de modo padrão (diminuição na conectividade) em oposição a mudanças na rede correta de controle executivo (aumento na conectividade). Curiosamente, a rede hipocampal poderia ser dividida em duas sub-redes: uma sub-rede funcional primária centrada no hipocampo e no córtex para-hipocampal, e uma segunda sub-rede funcional com o córtex retroesplenial como região central. A conectividade funcional na sub-rede primária do hipocampo aumentou pré-para pós-tarefa e pré-para pós-pausa. A conectividade funcional na segunda sub-rede do hipocampo diminuiu nas quatro sessões em estado de repouso – mais proeminentemente durante o intervalo para dormir – apenas para os participantes que dormiram durante o intervalo, mas não para aqueles que permaneceram acordados. Tal como os resultados da nossa análise do comportamento e do sono, as condições de memória (alo vs. ego) não afetaram as mudanças em nenhuma destas redes. Nossas descobertas sugerem mudanças de conectividade relacionadas a tarefas e consolidação nas redes funcionais que podem estar relacionadas a reativações de memória.
Finalmente, pretendemos relacionar nossos resultados de EEG do sono com as mudanças na conectividade do estado de repouso e no desempenho da memória. O acoplamento fuso-oscilação lenta foi positivamente relacionado às mudanças dependentes do sono na segunda sub-rede do hipocampo e ao desempenho da memória. Isto foi específico para o sono após a aprendizagem e não foi observado na sessão de controle do sono. Tomados em conjunto, o acoplamento preciso da oscilação lenta do fuso parece ter relevância comportamental e potencialmente ter significado funcional na consolidação da memória. Este acoplamento pode ser um mecanismo pelo qual a conectividade funcional na rede do hipocampo é modulada durante a consolidação da memória.
4.1|Mudanças de conectividade em redes em estado de repouso
Geralmente, foi demonstrado que as tarefas podem afetar a atividade cerebral em estado de repouso pós-tarefa (Lewis et al., 2009). Por exemplo, a modulação da atividade cerebral espontânea dependente da aprendizagem após a tarefa foi observada para tarefas cognitivas envolvendo memória de trabalho, emoção e treinamento motor (Lewis et al., 2009). Tal modulação de regiões cerebrais associadas a uma tarefa anterior pode ser entendida como uma forma de consolidação do estado de repouso, possivelmente envolvendo mecanismos semelhantes aos da consolidação da memória relacionada ao sono (Tambini & Davachi, 2019). A análise de conectividade em estado de repouso é baseada na correlação de diferentes voxels dentro de uma rede. As reativações da memória neuronal e o fortalecimento das redes de memória devem levar ao aumento da coativação da rede de memória, o que poderia, portanto, aumentar potencialmente a conectividade intra-rede conforme medimos aqui. Assim, pode-se interpretar nossos resultados como mudanças nas reativações que ocorrem durante o estado de repouso. Mostramos mudanças opostas no controle executivo e na rede principal do hipocampo, em contraste com o desempenho da rede no modo padrão pré e pós-tarefa. O controle executivo e a rede do hipocampo aumentaram, enquanto a rede do modo padrão diminuiu na conectividade funcional. Se essas mudanças de conectividade forem induzidas pela ocorrência de reativações, os resultados indicariam que após uma tarefa há mais reativações tanto na rede de controle executivo quanto no hipocampo. Também mostramos uma diminuição específica do sono na conectividade em uma segunda rede do hipocampo, incluindo o córtex retroesplenial. Potencialmente, esta rede poderia ser a ligação entre o hipocampo e áreas a jusante, como o córtex parietal, que faz parte da rede de controle executivo (Genzel, 2020). Uma diminuição na conectividade nesta rede indicaria, portanto, que as reativações que ocorrem na rede de controle executivo e no hipocampo são mais independentes umas das outras após o sono. Em contraste, depois de acordar, quando não há tal diminuição na conectividade, as reativações no córtex e no hipocampo ainda estariam ligadas. Foi proposto anteriormente que, uma vez progredida a consolidação do hipocampo para o córtex, a reativação no córtex ocorre independentemente das reativações do hipocampo. Nossos resultados poderiam potencialmente apoiar essa ideia. No entanto, a medida da conectividade dentro da rede em estado de repouso é muito indireta e, portanto, esta descoberta deve ser confirmada com medidas mais diretas, como registros simultâneos de hipocampo e neurônios corticais em roedores.
4.2|Mudanças relacionadas a tarefas no controle executivo correto e na rede de modo padrão
Nossas descobertas estão alinhadas com a análise deste conjunto de dados realizada por Samanta et al. (2021). Ao medir as mudanças na atividade BOLD durante as sessões de aprendizagem e recuperação enquanto os participantes realizavam a tarefa, observamos um aumento relacionado ao sono nas regiões de controle executivo e uma diminuição nas regiões do modo padrão. Na análise atual, observamos aumentos na conectividade dentro da rede para a rede de controle executivo e diminuições na rede em modo padrão nas diferentes sessões de estado de repouso. É digno de nota que os resultados atuais não são específicos para a condição de sono, em contraste com os resultados da análise de atividade de Samanta et al. Essa discrepância pode ser devida a diferentes abordagens de análise. Samanta et al. (2021) investigaram mudanças na resposta BOLD, mas não na conectividade funcional, para as duas redes separadamente. A sua análise de conectividade funcional foi construída com base numa abordagem baseada em sementes que testou as interações entre um centro predefinido da rede de controlo executivo e o resto do cérebro. Em contraste, utilizamos a análise de componentes independentes para definir nossas redes sem suposições a priori e avaliamos as mudanças funcionais de conectividade apenas dentro de cada uma dessas redes. Essas diferenças metodológicas podem ter contribuído para os resultados diferentes das duas análises. Acredita-se que a rede de controle executivo aloque a atenção entre tarefas visuoespaciais e esteja envolvida em comportamentos e navegação direcionados a objetivos. Especificamente, o córtex parietal posterior serve como um local de integração cortical para informações espaciais alocêntricas geradas no hipocampo e orientação espacial egocêntrica para orientar a navegação direcionada a objetivos (Nitz, 2012; Whitlock et al., 2008). Além disso, há evidências de repetição sequencial ou reativação padronizada de regiões cerebrais no repouso pós-tarefa envolvidas na codificação de uma experiência anterior (Hoffman & McNaughton, 2002; Staresina et al., 2013). Tomadas em conjunto, as evidências sobre o papel central do córtex parietal na navegação espacial e na repetição no repouso pós-tarefa em regiões cerebrais relevantes para a tarefa alinham-se com nossas descobertas. Observamos aumento da conectividade funcional na rede de controle executivo direita centrada no lobo parietal posterior inferior e no sulco no estado de repouso, do desempenho pré ao pós-tarefa. Os primeiros estudos de neuroimagem definiram a rede de modo padrão como uma rede negativa para tarefas que diminui a conectividade funcional durante o desempenho da tarefa em comparação com o estado de repouso (Buckner et al., 2008). No entanto, usando medidas da teoria dos grafos, Lin et al. (2017) forneceram uma visão temporalmente resolvida da dinâmica da rede no modo padrão durante o descanso pré-tarefa, desempenho da tarefa e descanso pós-tarefa. Eles encontraram uma diminuição na eficiência, uma medida de integração funcional, na rede de modo padrão no descanso pós-tarefa em comparação com o descanso pré-tarefa. A eficiência global diminuiu em toda a rede e a eficiência local diminuiu especificamente no córtex cingulado posterior. Nossos resultados também demonstram que a rede de modo padrão, com influência considerável do córtex cingulado posterior, diminui a conectividade funcional do descanso pré para pós-tarefa. Deve-se ressaltar que, como resultado da análise de componentes independentes (ICA) e do procedimento de correspondência de modelos, o córtex cingulado posterior, o córtex pré-frontal e o córtex parietal posterior lateral contribuíram mais fortemente para a conectividade de rede no modo padrão. Estudos anteriores, incluindo Samanta et al. (2021), também consideraram o hipocampo e o córtex retroesplenial como centros funcionais nesta rede (Greicius et al., 2003; Vincent et al., 2006). Juntas, todas essas regiões foram propostas para formar uma rede de memória na qual a informação é retransmitida do hipocampo através do córtex pré-frontal e retroesplenial para as regiões parietais a jusante durante a consolidação (Genzel, 2020). No entanto, em nosso estudo, o hipocampo e o córtex retroesplenial faziam parte principalmente de uma rede hipocampal separada. Assim, vários achados em nosso estudo que foram previamente atribuídos à rede de modo padrão são aqui discutidos separadamente para a rede do hipocampo, incluindo o hipocampo, as regiões do lobo temporal e o córtex retroesplenial. Nosso pipeline de processamento de fMRI foi baseado em um ICA que criou redes espaciais com independência máxima. Assim, não fomos capazes de testar interações entre as redes funcionais em estado de repouso. No entanto, as tendências opostas no controle executivo correto e na conectividade funcional das redes de modo padrão sugerem a mesma direção das pesquisas anteriores. Foi demonstrado que mudanças opostas entre a rede de modo padrão e a rede de controle executivo facilitam a transferência entre o repouso e a concentração da atenção (Goulden et al., 2014; Menon & Uddin, 2010). Esta transferência envolve a realocação de recursos dentro do cérebro para apoiar o processamento cognitivo relacionado ao estímulo. Com base nas nossas observações, o antagonismo na conectividade funcional entre as duas redes pode não apenas estar presente nas transições de repouso para tarefa, mas persistir mesmo no repouso pós-tarefa e poderia, assim, refletir a coordenação offline de áreas relevantes para fortalecer a experiência codificada.
4.3|O papel da rede hipocampal na consolidação da memória
Através do SVD, fomos capazes de identificar duas sub-redes funcionalmente relevantes dentro da rede do hipocampo, uma sub-rede do hipocampo centrada no hipocampo e no córtex para-hipocampal e uma segunda sub-rede do hipocampo envolvendo principalmente o córtex retroesplenial. Essas sub-redes mostraram alterações distintas de conectividade funcional nas quatro sessões de fMRI em estado de repouso. A sub-rede primária do hipocampo aumentou a conectividade funcional após o desempenho da tarefa nas sessões de aprendizagem e recuperação. Esta descoberta pode estar subjacente a uma consolidação do estado de repouso semelhante à descrita para a rede de controlo executivo. Foi demonstrado que o hipocampo, como local inicial de armazenamento de memória, produz frequentemente reativações que levam a um melhor desempenho da memória após o repouso (Dupret et al., 2010). Também observamos um aumento na conectividade funcional após o intervalo de 90 minutos para esta sub-rede. À primeira vista, este aumento ao longo do período de consolidação parece contraintuitivo para os mecanismos propostos de consolidação de sistemas (Squire et al., 2015). Em vez disso, seria de esperar uma diminuição do envolvimento do hipocampo após um período de consolidação. No entanto, deve-se ter em mente que a medida atual não é a atividade em si, mas sim a conectividade da rede, e o nosso período de consolidação foi limitado a 90 minutos. A segunda sub-rede do hipocampo envolveu principalmente o córtex retroesplenial, mas também as regiões temporais mediais. Na literatura, o hipocampo, as regiões do lobo temporal e o córtex retroesplenial são frequentemente considerados parte da rede de modo padrão porque mostram forte coerência durante o repouso (Greicius et al., 2003; Vincent et al., 2006). No entanto, recentemente foi identificada uma sub-rede "temporal medial", cuja diminuição na conectividade durante o sono foi associada ao aumento do desempenho da memória espacial (Barnett et al., 2021; van Buuren et al., 2019). As regiões centrais desta rede incluem o lobo temporal medial e o córtex retroesplenial. Estas estruturas correspondem à nossa segunda sub-rede do hipocampo. Consequentemente, a nossa segunda sub-rede do hipocampo pode desempenhar um papel único na consolidação da memória (de Sousa et al., 2019; van Buuren et al., 2019). Funcionalmente, a conectividade da segunda sub-rede do hipocampo diminuiu nas quatro sessões de estado de repouso, mas apenas para os participantes na condição de sono. O lobo temporal medial e o córtex retroesplenial foram considerados relevantes para a navegação espacial em humanos e modelos de roedores (Epstein et al., 2017; Peigneux et al., 2004). Estas regiões são moduladas funcionalmente pelo sono, com uma dissociação gradual durante o sono profundo (Spoormaker et al., 2010). Assim, a segunda sub-rede do hipocampo pode estar coordenando os mecanismos de consolidação em todo o cérebro envolvendo a atividade de oscilação lenta do fuso durante o sono (Cowan et al., 2020; Navarro-Lobato & Genzel, 2020). De fato, mostramos que nossa segunda sub-rede do hipocampo centrada no córtex retroesplenial é significativamente modulada pelo sono e se relaciona positivamente com o poder de acoplamento da oscilação lenta do fuso, que também previu o desempenho da memória. O acoplamento de ondulações, fusos e oscilações lentas pode ser um mecanismo pelo qual as memórias são consolidadas durante o sono, desde o armazenamento inicial do hipocampo até áreas a jusante, como o córtex parietal posterior – através do córtex retroesplenial (Genzel, 2020; Hennies et al. , 2016). Nossa segunda sub-rede do hipocampo pode ser o substrato neural através do qual o sono exerce seus efeitos benéficos na consolidação da memória, além de uma forma geral de consolidação na sub-rede primária do hipocampo discutida anteriormente. Em resumo, mostramos que os padrões de conectividade funcional no cérebro subjacentes à consolidação de memórias podem não estar simplesmente confinados às redes estabelecidas de estado de repouso. Usando uma abordagem baseada em dados, identificamos sub-redes baseadas em variância. Especificamente, diferenciamos a rede do hipocampo em um componente independente do sono centrado no hipocampo e um componente dependente do sono centrado no retroespleno. Ambas as redes podem estar envolvidas na consolidação da memória espacial. No entanto, apenas a segunda sub-rede do hipocampo pode estar subjacente aos efeitos benéficos do sono na formação da memória, como é mostrado pela sua associação com o poder de acoplamento da oscilação lenta do fuso que previu o desempenho da memória. Nossas descobertas fornecem uma visão mais refinada da rede do hipocampo na consolidação da memória, na qual sua conectividade funcional em estado de repouso muda diferencialmente ao longo do aprendizado, consolidação e recuperação de uma tarefa de memória espacial em um paradigma de 1-dias.