Adultos saudáveis não têm muita imunidade de células B ao SARS-CoV-2 e sua solução
Mar 27, 2023
Resumir
A imunidade anterior ao SARS-CoV-2 pode ter implicações importantes para nossa compreensão da suscetibilidade e gravidade da COVID-19. A presença e a relevância clínica da imunidade preexistente das células B ainda precisam ser totalmente elucidadas. Aqui, fornecemos uma análise detalhada da imunidade das células B em indivíduos não expostos ao SARS-CoV-2. Para esse fim, investigamos extensivamente a imunidade humoral SARS-CoV-2 em 150 adultos amostrados antes da pandemia. A triagem abrangente de plasma de doadores e amostras de IgG purificadas, combinadas e neutralizadas em vários ensaios funcionais, não mostraram atividade substancial contra SARS-CoV-2, mas reatividade generalizada contra o coronavírus endêmico. Além disso, as sequências de anticorpos de 8174 células B reativas a sars-cov-2 foram analisadas na célula única
nível, e 158 anticorpos monoclonais foram gerados e testados. Nenhum desses anticorpos mostrou atividade de ligação ou neutralização associada ao SARS-CoV-2. Tomados em conjunto, nossos resultados não mostram evidências de anticorpos efetivos anteriores e imunidade de células B em adultos não expostos a SARS-CoV-2.
Palavras-chave
célula T; célula B; Cistanche; Verbascosídeo; EUcomunidade
Introdução
A atual pandemia de SARS Coronavirus 2 é uma emergência de saúde global que desafia os sistemas de saúde em todo o mundo. A infecção por SARS-CoV-2 tem uma ampla gama de manifestações clínicas, desde infecção assintomática até síndrome do desconforto respiratório agudo com risco de vida, falência múltipla de órgãos, choque séptico e morte. Embora influenciada por uma variedade de fatores, a gravidade da doença é amplamente determinada por respostas imunes inatas e adaptativas. A imunidade anterior ao SARS-CoV-2 pode ser um fator determinante da gravidade da doença e do resultado clínico. No entanto, a imunidade preexistente também pode afetar adversamente o curso clínico por meio de mecanismos antibo-dependentes (ADE) ou OAS que foram descritos anteriormente para outros patógenos virais.
Uma resposta imune de células T pré-existente contra SARS-CoV-2 foi observada em indivíduos não expostos a SARS-CoV-2. Nesses estudos, a reatividade das células T às proteínas spike (S) e nucleocapsídeo (N) e às proteínas não estruturais NSP7 e NSP13 foi medida usando pools de peptídeos antigênicos. É importante ressaltar que foi detectada uma reatividade significativa das células T aos polipeptídeos da proteína S, que mostraram uma alta homologia com o coronavírus humano local "resfriado comum" (HCoV), incluindo HCOV-OC43, HCOV-HK-1, HCOV-NL63 e HCOV -229e. Portanto, existe a hipótese de que a imunidade preexistente das células T contra o SARS-CoV-2 decorre da exposição anterior ao hcov endêmico.
Para determinar a presença de imunidade de células B preexistente SARS-CoV-2 associada, estudamos amostras de plasma, células B únicas e anticorpos monoclonais isolados de 150 indivíduos que não foram expostos a SARS-CoV-2. Não encontramos nenhuma evidência de imunidade prévia efetiva de células B que explicaria o amplo espectro clínico da infecção por SARS-CoV-2. Também fornece um impulso para a busca de novas soluções. Estudos demonstraram que o litenoside aumenta a proliferação de linfócitos e, portanto, tem um certo efeito no aumento do número de células B. Isso fornece uma nova maneira de aumentar a imunidade das pessoas.

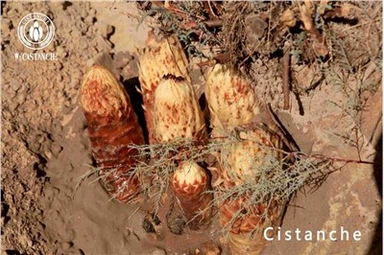
Foto: Faw Cistanche
Resultados
Anteriormente, identificamos regiões variáveis raras de cadeia pesada e cadeia leve em células B ingênuas pré-pandêmicas que não eram pareadas pela análise NGS em indivíduos saudáveis, que se assemelhavam muito ao anticorpo reativo sars-cov-2 da linhagem próxima. Algumas dessas cadeias pesadas e leves de células B primárias podem substituir as cadeias originais de anticorpos reativos sars-cov-2 sem alterar sua função. Essas descobertas se somam às observações anteriores de que alguns anticorpos reativos sars-cov-2 mostram sua atividade por assinaturas de sequência de codificação de espécies. Para investigar como essas descobertas se traduzem em respostas plasmáticas e se os anticorpos reativos sars-cov-2 já estão presentes no plasma de indivíduos não expostos, investigamos amostras de sangue pré-pandêmicas de 150 doadores. Amostras foram coletadas entre agosto e novembro de 2019 para estudar sua atividade de ligação e neutralização contra o SARS-CoV-2. Os doadores têm 18-66 anos. 49,3 por cento dos doadores eram do sexo masculino e 50,7 por cento do sexo feminino. Dados os resultados conflitantes publicados anteriormente, decidimos pesquisar rigorosamente por anticorpos reativos sars-cov-2 preexistentes usando diferentes testes simultaneamente. As amostras de plasma mostraram pouca ou nenhuma ligação de IgG, IgM e IgA à proteína SARS-CoV-2 S solúvel. Reatividade significativa foi detectada em um pequeno número de amostras. No entanto, nenhuma ligação foi detectada por imunoensaio comercial ou interno nas amostras de plasma investigadas. Para confirmar esse resultado, realizamos citometria de fluxo. Nenhuma das amostras mostrou qualquer atividade de ligação, exceto um doador que mostrou fraca atividade de IgG no plasma neste estudo. Atribuímos a detecção acidental da atividade de ligação ao uso de amostras de plasma não purificadas, que teriam produzido reatividade não específica.
Foto: Extrato de Cistanche
Em resumo, nenhuma das amostras pré-pandêmicas obtidas de 150 adultos apresentou reatividade ao SARS-CoV-2 nos vários ensaios aplicados. Portanto, com base na aplicação paralela de vários métodos de teste, não encontramos evidências convincentes de anticorpos reativos a sars-cov-2 em amostras de sangue testadas antes da pandemia. Experimentos em ratos mostraram que ratos tratados com extrato de cistanche apresentaram níveis mais altos de linfócitos, que podem se diferenciar em células B e T, do que aqueles que não o fizeram. Portanto, pode-se provar que o extrato de cistanche tem a função de aumentar a imunidade humana.

Foto: Efeitos do cistanche melhoram a imunidade
Discussão
Uma resposta imune adaptativa a um patógeno é formada pelo pool imune original e deixa sua marca em encontros anteriores com o mesmo patógeno ou variantes relacionadas. A investigação da imunidade existente ao SARS-CoV-2 pode avançar nossa compreensão da imunidade protetora, suscetibilidade à infecção, gravidade da doença e orientar o desenvolvimento de estratégias de vacinação. Embora vários estudos tenham fornecido evidências de imunidade preexistente de células T contra SARS-CoV-2, a imunidade preexistente de células B ainda precisa ser elucidada.
Recentemente, isolamos anticorpos reativos a sars-cov-2 de indivíduos convalescentes e identificamos sequências de cadeia pesada e/ou leve altamente semelhantes na biblioteca de receptores de células B virgens de amostras pré-pandêmicas. Aqui, mostramos que algumas dessas cadeias podem se tornar componentes de anticorpos reativos sars-cov-2 sem a necessidade de maior maturação de afinidade. Esta descoberta suporta observações anteriores de que as respostas de anticorpos que são facilmente detectadas em alguns indivíduos podem usar cadeias pesadas ou leves de anticorpos existentes características de diferentes padrões de recombinação de CDR3 ou sequências de codificação de linha germinal. De acordo com isso, os anticorpos neutralizantes de SARSCoV-2 foram isolados com sucesso de células B virgens usando classificação de célula B única específica de antígeno ou exibição de fagos. Feldman et ai. células B virgens isoladas de SARS-CoV-2 e reativas a Sarbecovire usando sucessivamente diferentes subdomínios de proteína de pico de SARS-CoV-2 como sondas de antígeno. Usando essa abordagem, eles relataram uma frequência média de 0.0025 por cento para células B virgens reativas rbm. A análise da sequência BCR mostrou que as cadeias pesadas e leves usaram uma variedade de genes policlonais, mas o gene v da cadeia pesada IGHV3-9 aumentou a frequência média de retenção em 20%. Por fim, anticorpos monoclonais foram isolados de precursores primitivos de células B que exibem atividade de ligação e neutralização contra a popular variante SARS-CoV-2 e o vírus coronavírus derivado de morcego. Bertoglio et ai. usou a tecnologia de exibição de fagos para isolar o anticorpo candidato STE73-2E9 do banco de células B original. O anticorpo teve como alvo a interface ACE2-RBD, não apresentou reação cruzada com outro coronavírus e neutralizou o verdadeiro SARS-CoV-2 vírus de tipo selvagem, com um IC50 de 0,43 nM. Tanto o polissacarídeo cistanche quanto o creinosídeo podem aumentar a atividade enzimática do tecido cardíaco e cerebral, aumentar a função de fagocitose das células da cavidade abdominal e aumentar a resposta proliferativa dos linfócitos.

Clique aqui para aumentar sua imunidade
Conclusão
Para investigar a possível imunidade preexistente no nível molecular, aplicamos a classificação de célula única específica do antígeno a 40 doadores e isolamos um total de 8.174 células B consideradas reativas a sars-cov-2. Consistente com nossa triagem de ligação e neutralização de amostras de plasma e IgG policlonal, a frequência de células B reativas a SARS-CoV-2-em amostras pré-pandêmicas foi muito baixa, especialmente em comparação com amostras convalescentes-19 de COVID. A seleção de proteínas chamariz adequadas para classificação de célula única é crucial para o isolamento de células B específicas do antígeno. A proteína decoy selecionada não apresenta estrutura imunogênica e é excluída do isolamento. Portanto, para garantir o isolamento total das células B específicas do antígeno, optamos por aplicar a proteína S SARS-CoV-2 S de trímero completo nativo e ajustar o portão de triagem. Com relação à baixa frequência de células B reativas a sars-cov-2 em nosso estudo, pode-se argumentar que a aplicação de proteínas chamariz alternativas, como a subunidade S2, seria vantajosa. A análise da sequência de anticorpos de células B reativas a sars-cov-2 isoladas mostrou que o gene V de cadeia pesada foi usado de maneira diferente, o comprimento de CDRH3 foi normalmente distribuído e a identidade filogenética do gene VH foi semelhante ao receptor BCR ingênuo biblioteca de indivíduos saudáveis amostrados antes da pandemia. Em conclusão, adultos saudáveis não têm um grande número de imunidade de células B ao SARS-CoV-2, mas um certo período de administração de extrato de cistanche pode melhorar a função imunológica humana e aumentar o conteúdo de células B e células T. Até certo ponto, isso forneceu um novo caminho para o tratamento e prevenção da COVID-19.
Referências
1.Anderson, EM, Goodwin, EC, Verma, A., Arevalo, CP, Bolton, MJ, Weirick, ME, Gouma, S., McAllister, CM, Christensen, SR, Weaver, J., et al. (2021). Os anticorpos sazonais do coronavírus humano são aumentados na infecção por SARS-CoV-2, mas não estão associados à proteção. Cela 184, 1858–1864.e10.
2.Arevalo, CP, Le Sage, V., Bolton, MJ, Eilola, T., Jones, JE, Kormuth, KA, Nturibi, E., Balmaseda, A., Gordon, A., Lakdawala, SS, et al . (2020). Priming de sin priming antigênico original de anticorpos de haste de hemaglutinina do vírus influenza. Proc. Nacional Acad. ciência 117, 17221–17227.
3.Arvin, AM, Fink, K., Schmid, MA, Cathcart, A., Spreafico, R., Havenar-Daughton, C., Lanzavecchia, A., Corti, D. e Virgin, HW (2020). Uma perspectiva sobre o possível aprimoramento dependente de anticorpos do SARS-CoV-2. Natureza 584, 353–363.
4.Bacher, P., Rosati, E., Esser, D., Martini, GR, Saggau, C., Schiminsky, E., Dargvainiene, J., Schröder, I., Wieters, I., Khodamoradi, Y., e outros. (2020). Respostas de células T CD4+ de baixa avidez ao SARS-CoV-2 em indivíduos não expostos e humanos com COVID grave-19. Imunidade 53, 1258–1271.e5.
5.Barnes, CO, West, AP, Huey-Tubman, KE, Hoffmann, MAG, Sharaf, NG, Hoffman, PR, Koranda, N., Gristick, HB, Gaebler, C., Muecksch, F., et al. (2020a). Estruturas de anticorpos humanos ligados ao pico de SARS-CoV-2 revelam epítopos comuns e características recorrentes de anticorpos. Cela 182, 828–842.e16.
6.Barnes, CO, Jette, CA, Abernathy, ME, Dam, K.-MA, Esswein, SR, Gristick, HB, Malyutin, AG, Sharaf, NG, Huey-Tubman, KE, Lee, YE, et al. (2020b). SARS-CoV-2 anticorpo neutralizante
as estruturas informam as estratégias terapêuticas. Natureza 588, 682-687.
7.Barnes, CO, Jette, CA, Abernathy, ME, Dam, K.-MA, Esswein, SR, Gristick, HB, Malyutin, AG, Sharaf, NG, Huey-Tubman, KE, Lee, YE, et al. (2020b). SARS-CoV-2 estruturas de anticorpos neutralizantes informam estratégias terapêuticas. Natureza 588, 682-687.
8.Braun, J., Loyal, L., Frentsch, M., Wendisch, D., Georg, P., Kurth, F., Hippenstiel, S., Dingeldey, M., Kruse, B., Fauchere, F ., e outros. (2020). SARSCoV-2-células T reativas em doadores saudáveis e pacientes com COVID-19. Natureza 587, 270–274.
9.Brouwer, PJM, Caniels, TG, van der Straten, K., Snitselaar, JL, Aldon, Y., Bangaru, S., Torres, JL, Okba, NMA, Claireaux, M., Kerster, G., et al. (2020). Anticorpos neutralizantes potentes de pacientes com COVID-19 definem múltiplos alvos de vulnerabilidade. Ciência 369, 643–650
10.Cao, Y., Su, B., Guo, X., Sun, W., Deng, Y., Bao, L., Zhu, Q., Zhang, X., Zheng, Y., Geng, C ., e outros. (2020). Anticorpos neutralizantes potentes contra SARS-CoV-2 identificados por sequenciamento de célula única de alto rendimento de células B de pacientes convalescentes. Cela 182, 73–84.e16.
11.Chau, NVV, Nhan, LNT, Nguyet, LA, Tu, NTK, Hong, NTT, Man, DNH, Ty, DTB, Nhu, LNT, Yen, LM, Khanh, TH, et al. (2021). Ausência de anticorpos SARS-CoV-2 no plasma pré-pandêmico de crianças e adultos no Vietnã. Int. J. Infectar. Dis. 111, 127–129.
12.Chau, NVV, Nhan, LNT, Nguyet, LA, Tu, NTK, Hong, NTT, Man, DNH, Ty, DTB, Nhu, LNT, Yen, LM, Khanh, TH, et al. (2021). Ausência de anticorpos SARS-CoV-2 no plasma pré-pandêmico de crianças e adultos no Vietnã. Int. J. Infectar. Dis. 111, 127–129.
13.Chau, NVV, Nhan, LNT, Nguyet, LA, Tu, NTK, Hong, NTT, Man, DNH, Ty, DTB, Nhu, LNT, Yen, LM, Khanh, TH, et al. (2021). Ausência de anticorpos SARS-CoV-2 no plasma pré-pandêmico de crianças e adultos no Vietnã. Int. J. Infectar. Dis. 111, 127–129.
14.Crawford, KHD, Eguia, R., Dingens, AS, Loes, AN, Malone, KD, Wolf, CR, Chu, HY, Tortorici, MA, Veesler, D., Murphy, M., et al. (2020). Protocolo e reagentes para pseudotipagem de partículas lentivirais com proteína spike SARS-CoV-2 para ensaios de neutralização. Vírus 12, 513.
15.de Alwis, R., Williams, KL, Schmid, MA, Lai, C.-Y., Patel, B., Smith, SA, Crowe, JE, Wang, W.-K., Harris, E., e de Silva, AM (2014). Os vírus da dengue são reforçados por populações distintas de sorotipos de anticorpos de reação cruzada em soros imunes humanos. Plos Pathog. 10, e1004386.
16.Echeverrı´a, G., Guevara, A´ ., Coloma, J., Ruiz, AM, Vasquez, MM, Tejera, E., and de Waard, JH (2021). Imunidade pré-existente de células T ao SARSCoV-2 em controles saudáveis não expostos no Equador, conforme detectado com um ensaio de liberação de interferon-gama COVID-19. Int. J. Infectar. Dis. 105, 21–25.
17.Ehrhardt, SA, Zehner, M., Kra¨hling, V., CohenDvashi, H., Kreer, C., Elad, N., Gruell, H., Ercanoglu, MS, Schommers, P., Gieselmann, L ., e outros. (2019). Resposta de anticorpos policlonais e convergentes à vacina contra o vírus Ebola rVSV-ZEBOV. Nat. Med. 25, 1589-1600.
18. Esper, F., Weibel, C., Ferguson, D., Landry, ML e Kahn, JS (2005). Evidência de um novo coronavírus humano associado a doenças respiratórias
doença do trato respiratório em lactentes e crianças pequenas. J. Infectar. Dis. 191, 492–498.
19.Katzelnick, LC, Gresh, L., Halloran, ME, Mercado, JC, Kuan, G., Gordon, A., Balmaseda, A. e Harris, E. (2017). Aumento dependente de anticorpos da doença grave da dengue em humanos. Ciência 358, 929–932.
20.Hurlburt, NK, Seydoux, E., Wan, Y.-H., Edara,VV, Stuart, AB, Feng, J., Suthar, MS, McGuire,AT, Stamatatos, L., e Pancera, M. (2020).Base estrutural para neutralização potente de SARSCoV-2 e papel da maturação da afinidade do anticorpo.Nat. Comum. 11, 5413.