PARTE 2 O polissacarídeo Cistanche Deserticola induz a melanogênese em melanócitos e reduz o estresse oxidativo através da ativação da via NRF2/HO-1
Mar 02, 2022
CLIQUE AQUI PARA VER A PARTE UM
Contato:joanna.jia@wecistanche.com

cistacheefeito clareador na pele para anti-oxidação

4|DISCUSSÃO E CONCLUSÕES
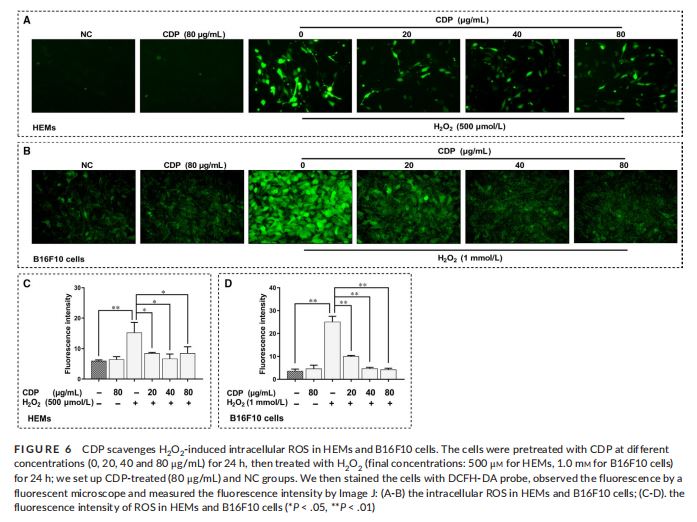
Neste estudo, investigamos o papel da CDP em HEMs e células B16F10. Pela primeira vez, descobrimos que o CDP pode promover melanogênese em melanócitos e promover pigmentação em peixe-zebra. Um experimento subsequente mostrou que a via de sinalização MAPK foi ativada sob tratamento com CDP. Investigamos ainda mais o seu papel naoxidativoestresse e descobriram que CDP poderia atenuar a citotoxicidade e apoptose induzidas por H2O2- em melanócitos; enquanto isso, o CDP pode ativar a via antioxidante NRF2/HO-1 e eliminar ROS intracelular soboxidativoestressecondições.

CistanchePolissacarídeos Podem Antioxidante
A proteína quinase ativada por mitógeno é uma via vital envolvida na regulação do MITF, um fator de transcrição chave que promove a expressão de genes relacionados à melanogênese e subsequentemente afeta a síntese e o transporte de melanina.26,27 Em nosso estudo, a ativação de ERK, JNK , e p38 em melanócitos aumentou significativamente após o tratamento com CDP; enquanto isso, as expressões de MITF/p-MITF e TYR acionado por MITF, TRP1, TRP2 e RAB27A foram reguladas de acordo. Assim, sugerimos que o CDP pode promover a melanogênese por meio da ativação da via MAPK, mas como o CDP ativa as MAPKs permanece desconhecido. De acordo com estudos recentes, o receptor toll-like 4 (TLR4) é altamente expresso em melanócitos e está envolvido na melanogênese.28,29 O TLR4 é uma importante proteína transmembrana que pode se ligar especificamente ao lipopolissacarídeo (LPS)30; estudos relataram que o LPS pode induzir a melanogênese.29 Curiosamente, váriospolissacarídeosextraído de plantas ou cogumelos supostamente ativados TLRs e vias de sinalização a jusante, como MAPK e fator nuclear kappa beta (NF-κB).31,32 Portanto, suspeitamos que CDP pode ser reconhecido e ligado por TLRs, então ativa o sinal MAPK a jusante- ling e promove a melanogênese. Além disso, os receptores semelhantes a domínios de oligomerização de ligação de nucleotídeos (NLRs) são conhecidos por reconhecer ligantes intracelulares e conduzir a ativação das vias de sinalização MAPK e NF-κB.33,34 Conforme relatado, polissacarídeos extraídos de Ganoderma lucidum e Astragalus podem entrar nas células e afetam os NLRs.35,36 Assim, é possível que a CDP possa entrar nos melanócitos e regular a via de sinalização da MAPK via NLRs. No entanto, mais estudos são necessários para verificar essa hipótese.
Alguns estudos até o momento relataram a aplicação deervaspolissacarídeosna melanogênese para inibir a produção de melanina.37,38 No entanto, neste estudo, a CDP promoveu a melanogênese em

melanócitos, e este efeito foi ainda confirmado após comparação com -MSH. O CDP também é um tipo depolissacarideoextraídos de ervas, suspeitamos que o efeito oposto do CDP pode estar relacionado às diferenças estruturais entre o CDP e outrospolissacarídeos. Polissacarídeossão formados pela polimerização de monossacarídeos, mas são variáveis no tipo de monossacarídeo, composição de monossacarídeo, ligação glicosídica, estrutura de cadeia lateral e peso molecular39,40; acredita-se que esses fatores determinam suas funções biológicas.41 Estudos existentes propuseram a estrutura do CDP e sugeriram que a estrutura do CDP posteriormente influencia sua função.42 Assim, mais provas são necessárias para entender completamente o CDP e confirmar nossa hipótese.
A melanogênese é um importante mecanismo protetor de resistência ao dano ultravioleta e manutenção da homeostase corporal43; ao mesmo tempo, os melanócitos são facilmente expostos a ambientes desfavoráveis, como a sobrecarga de ROS.11 Sabe-se que as EROs participam na promoção da melanogênese, um dos mecanismos é a ativação de MAPKs.44 Mas estudos também revelaram que esse efeito existe apenas dentro de uma determinada ERO enquanto a sobrecarga de ROS prejudica significativamente a melanogênese.45 A relação entre ROS, MAPK e melanogênese é variável em diferentes condições, portanto, o equilíbrio entre os sistemas pró e antioxidantes é obviamente importante. Em doenças de despigmentação, como o vitiligo, um sistema antioxidante desequilibrado e sobrecarga incontrolável de ROS danificará os melanócitos e diminuirá a viabilidade celular.11,46 Neste estudo, usamos diferentes concentrações de H2O2 para simular a sobrecarga de ROS nas células, e os HEMs mostraram menor tolerância a H2O2 do que células B16F10. Quando os melanócitos foram submetidos ao tratamento com H2O2, sua viabilidade e taxa de apoptose pioraram, mas

acteosídeo emcistachepode anti-envelhecimento
O pré-tratamento com CDP pode reverter parcialmente a tendência. Ao mesmo tempo, o ROS foi eliminado. Conforme relatado, a ativação da via de antioxidação NRF2/ARE é o principal método de eliminação de ROS em células da pele.14 Em nossos experimentos, os níveis de proteína de NRF2 e HO-1 em melanócitos foram regulados positivamente após tratamento com H2O2 sem CDP; isso significa que H2O2-induzidooxidativoo estresse pode ativar a via NRF2/HO-1, mas é insuficiente para manter um equilíbrio redox e proteger a célula de lesões. No entanto, o pré-tratamento com CDP melhorou a via de antioxidação NRF2/HO-1 e restaurou o equilíbrio. Assim, sugerimos que a CDP pode proteger os melanócitos da lesão por estresse oxidativo através da ativação da via de antioxidante NRF2/HO-1 e eliminação de ROS.
Descobrimos que o tratamento com CDP sozinho não tem influência sobre ROS ou NRF2/HO-1 em melanócitos. Este resultado sugere que o CDP pode afetar o equilíbrio redox soboxidativoestresse, mas não condições normais. Além disso, a via de antioxidação NRF2/HO-1 é regulada pelas vias de sinalização PI3K, NF-κB e MAPK.47,48 Em nosso estudo, a CDP foi capaz de ativar a via de sinalização MAPK. É possível que o CDP possa ativar a via NRF2/HO-1 via MAPKs de regulação positiva. Como Slominski relatou, os melanócitos são sensores de estresse envolvidos em uma rede regulatória e suas funções podem mudar rapidamente em resposta ao ambiente. sistema em condições normais, mas restaurar o equilíbrio redox soboxidativocondições de estresse. Portanto, a função e a sobrevivência dos melanócitos podem ser mantidas de duas maneiras diferentes pela CDP. A CDP ajuda os melanócitos a manter a homeostase, que também é uma função importante da melanogênese.50,51
Em conclusão, a CDP pode promover a melanogênese dos melanócitos
através da ativação da via de sinalização MAPK. A CDP pode melhorar a sobrevivência dos melanócitos ativando a via antioxidante NRF2/HO-1 e eliminando ROS intracelulares sob condições de estresse oxidativo. Nossos achados são significativos porque demonstram que a CDP pode promover a melanogênese e proteger os melanócitos da lesão do estresse oxidativo, que possivelmente é responsável pela disfunção e perda de melanócitos. Os achados deste estudo indicam que a CDP pode ser uma nova droga no tratamento de doenças de despigmentação.

Cistanchedeserticola tem muitos efeitos
AGRADECIMENTOS
Este trabalho foi apoiado pela Fundação Nacional de Ciências Naturais da China (Nº 81703101), os Projetos Novos Talentos Xiangya do Terceiro Hospital Xiangya da Universidade Centro-Sul (Nº JY201623 e Nº 20170301), a Fundação de Ciências Naturais da Província de Hunan ( Nº 2018JJ3788 e Nº 2018JJ3793) e o Projeto da comissão de saúde de Hunan (Nº C2019173). Dr. Yibo Hu realizou a parte principal do estudo e escreveu o manuscrito; O professor Jing Chen e Qinghai Zeng projetaram o estudo e orientaram a redação do manuscrito; Os professores Jinhua Huang, Lihua Huang e Hong Xiang forneceram suporte técnico e analisaram os dados; Dr. Yixiao Li, Ling Jiang, Yujie Ouyang, Yumeng Li, Lun Yang e Xiaojiao Zhao contribuíram com parte dos experimentos.
CONFLITO DE INTERESSES
Os autores confirmam que não há conflitos de interesse.
DECLARAÇÃO DE DISPONIBILIDADE DE DADOS
Os dados que suportam os achados deste estudo estão disponíveis com o autor correspondente mediante solicitação razoável.
REFERÊNCIAS
1. Bleuel R, Eberlein B. Manejo terapêutico do vitiligo. J Dtsch Dermatol Ges. 2018;16:1309-1313.
2. Taieb A, Meurant JM. Devemos priorizar intervenções psicológicas no manejo do vitiligo? J Eur Acad Dermatol Venereol. 2018;32:2053-2054.
3. Picardo M, Dell'Anna ML, Ezzedine K, et al. Vitiligo. Nat Rev Dis Primers. 2015;1:15011.
4. Slominski A, Tobin DJ, Shibahara S, Wortsman J. Pigmentação de melanina na pele de mamíferos e sua regulação hormonal. Physiol Rev. 2004;84:1155-1228.
5. Slominski A, Zmijewski MA, Pawelek J. L-tirosina e L-dihidroxifenilalanina como reguladores semelhantes a hormônios das funções dos melanócitos. Res. de Melanoma de Células Pigmentadas. 2012;25:14-27.
6. Spritz RA. Relações genéticas compartilhadas subjacentes ao vitiligo generalizado e à doença autoimune da tireoide. Tireoide. 2010;20:745-754.
7. Lin X, Tang LY, Fu WW, Kang KF. Vitiligo infantil na China: perfis clínicos e achados imunológicos em 620 casos. Am J Clin Dermatol. 2011;12:277-281.
8. Boehncke WH, Brembilla NC. Linfócitos T autorreativos em Doenças Inflamatórias da Pele. Frente Immunol. 2019;10:1198.
9. Iannella G, Greco A, Didona D, et al. Vitiligo: Patogênese, variantes clínicas e abordagens de tratamento. Autoimmun Rev. 2016;15:335-343.
10. Forrester SJ, Kikuchi DS, Hernandes MS, et al. Espécies reativas de oxigênio na sinalização metabólica e inflamatória. Circ Res. 2018;122:877-902.
11. Denat L, Kadekaro AL, Marrot L, et al. Melanócitos como instigadores e vítimas do estresse oxidativo. J Invest Dermatol. 2014;134:1512-1518.
12. Qiu L, Song Z, Setaluri V. Estresse oxidativo e vitiligo: a conexão de sinalização Nrf2-ARE. J Invest Dermatol. 2014;134:2074-2076.
13. Hayes JD, Dinkova-Kostova AT. A rede reguladora Nrf2 fornece uma interface entre o metabolismo redox e intermediário. Trends Biochem Sci. 2014;39:199-218.
14. Marrot L, Jones C, Perez P, Meunier JR. O significado da via Nrf2 na resposta ao estresse (foto)-oxidativo em melanócitos e queratinócitos da epiderme humana. Res. de Melanoma de Células Pigmentadas. 2008;21:79-88.
15. van Geel N, Speeckaert R, Mollet I, et ai. Modelo de indução e terapia de vitiligo in vivo: um ensaio clínico randomizado duplo-cego. Res. de Melanoma de Células Pigmentadas. 2012;25:57-65.
16. Nicolaidou E, Antoniou C, Stratigos A, Katsambas AD. Fototerapia ultravioleta B de banda estreita e 308-excimer laser nm no tratamento do vitiligo: uma revisão. J Am Acad Dermatol. 2009;60:470-477.
17. Novak Z, Bonis B, Baltas E, et ai. O laser ultravioleta B de cloreto de xenônio é mais eficaz no tratamento da psoríase e na indução da apoptose das células T do que o ultravioleta B de banda estreita. J Photochem Photobiol B Biol. 2002;67:32-38.
18. Xu P, Su S, Tan C, et al. Efeitos de extratos aquosos de Eclipse herba, Polygoni multiflora radix praeparata e Rehmanniae radix praeparata na melanogênese e na migração de melanócitos humanos. J Etnofarmacol. 2017;195:89-95.
19. Wang T, Zhang X, Xie W. Cistanche deserticola YC Ma, "Desert ginseng": uma revisão. Am J Chin Med. 2012;40:1123-1141.
20. Guo Y, Cao L, Zhao Q, et al. Caracterizações preliminares da atividade antioxidante e hepatoprotetora do polissacarídeo de Cistanche deserticola. Int J Biol Macromol. 2016;93:678-685.
21. Cai RL, Yang MH, Shi Y, et al. Atividade antifadiga do extrato rico em feniletanoides de Cistanche deserticola. Phytother Res. 2010;24:313-315.
22. Zhang H, Xiang Z, Duan X, et al. Efeitos antitumorais e anti-inflamatórios dos oligossacarídeos do extrato de Cistanche deserticola na lesão medular. Int J Biol Macromol. 2019;124:360-367.
23. Liu Y, Wang H, Yang M, et al. Os polissacarídeos Cistanche deserticola protegem as células PC12 contra lesões induzidas por OGD/RP. Farmacêutico Biomédico. 2018;99:671-680.
24. Song D, Cao Z, Liu Z, et al. O polissacarídeo Cistanche deserticola atenua a osteoclastogênese e a reabsorção óssea através da inibição da sinalização RANKL e da produção de espécies reativas de oxigênio. J Cell Physiol. 2018;233:9674-9684.
25. Fu C, Chen J, Lu J, et al. A regulação negativa do TUG1 promove a melanogênese e a melanogênese induzida por UVB. Exp Dermatol. 2019;28:730-733.
26. Johannessen CM, Johnson LA, Piccioni F, et al. Um programa de linhagem de melanócitos confere resistência à inibição da via MAP quinase. Natureza. 2013;504:138-142.
27. Vachtenheim J, Borovansky J. "Fisiologia da transcrição" da formação do pigmento nos melanócitos: papel central do MITF. Exp Dermatol. 2010;19:617-627.
28. Yu N, Zhang S, Zuo F, et al. Os melanócitos humanos cultivados expressam receptores funcionais semelhantes a toll 2–4, 7 e 9. J Dermatol Sci. 2009;56:113-120.
29. Ahn JH, Park TJ, Jin SH, Kang HY. Os melanócitos humanos expressam o receptor funcional do tipo Toll 4. Exp Dermatol. 2008;17:412-417.
30. Reed SG, Carter D, Casper C, et al. Correlatos das atividades dos adjuvantes da família GLA. Semin Immunol. 2018;39:22-29.
31. Guo MZ, Meng M, Feng CC, et al. Um novo polissacarídeo obtido de Craterellus cornucopioides aumenta a atividade imunomoduladora em modelos de camundongos imunossupressores através da regulação da via TLR4-NF-kappaB. Função Alimentar. 2019;10(8):4792-4801.
32. Wei W, Xiao HT, Bao WR, et al. TLR-4 pode mediar vias de sinalização da expressão de citocinas induzidas por RAP do polissacarídeo de Astragalus de células RAW264.7. J Etnofarmacol. 2016;179:243-252.
33. Chen H, Yang D, Han F, et al. O efetor T6SS bacteriano EvpP previne a ativação do inflamassoma NLRP3 inibindo a via MAPK-Jnk dependente de Ca(2 plus). Micróbio Hospedeiro Celular. 2017;21:47-58.
34. Levy M, Shapiro H, Thaiss CA, Elinav E. NLRP6: um sensor imune inato multifacetado. Tendências Immunol. 2017;38:248-260.
35. Chen YS, Chen QZ, Wang ZJ, Hua C. Efeitos anti-inflamatórios e hepatoprotetores de polissacarídeos de Ganoderma lucidum contra lesão hepática induzida por tetracloreto de carbono em camundongos Kunming. Farmacologia. 2019;103:143-150.
36. Tian Z, Liu Y, Yang B, et al. O polissacarídeo de astrágalo atenua a colite murina através da inibição do inflamassoma NLRP3. Planta Med. 2017;83:70-77.
37. Jiang L, Huang J, Lu J, et al. O polissacarídeo Ganoderma lucidum reduz a melanogênese ao inibir os efeitos parácrinos de queratinócitos e fibroblastos pela via IL-6/STAT3/FGF2. J Cell Physiol. 2019;234:22799-22808.
38. Cai ZN, Li W, Mehmood S, et al. Efeito do polissacarídeo FMP-1 de Morchella esculenta na melanogênese em células B16F10 e peixe-zebra. Função Alimentar. 2018;9:5007-5015.
39. Zhang C, Li Z, Zhang CY, et al. Características moleculares e bioatividades de polissacarídeos de alfafa (Medicago sativa L.). Nutrientes. 2019;11:1181.
40. Coconi Linares N, Di Falco M, Benoit-Gelber I, et al. A presença de componentes traço amplia significativamente a resposta molecular de Aspergillus niger à goma guar. Nova Biotecnologia. 2019;51:57-66.
41. Ma H, Zhang K, Jiang Q, et al. Caracterização de polissacarídeos vegetais de Dendrobium officinale por múltiplas técnicas de cromatografia e espectrometria de massa. J Chromatogr A. 2018;1547:29-36.
42. Dong Q, Yao J, Fang JN, Ding K. Caracterização estrutural e atividade imunológica de dois polissacarídeos extraíveis de água fria de Cistanche deserticola YC Ma. Res. Carboidratos. 2007;342:1343-1349.
43. Slominski AT, Zmijewski MA, Plonka PM, et al. Como a luz UV toca o cérebro e o sistema endócrino através da pele e por quê. Endocrinologia. 2018;159:1992-2007.
44. Schalke S. Novos dados sobre distúrbios de hiperpigmentação. J Eur Acad Dermatol Venereol. 2017;31(Suplemento 5):18-21.
45. Glassman SJ. Vitiligo, espécies reativas de oxigênio e células T. Clin Sci. 2011;120:99-120.
46. Ristow M. Desvendando a verdade sobre antioxidantes: mitohormese explica os benefícios de saúde induzidos por ROS. Nat Med. 2014;20:709-711.
47. Balogun E, Hoque M, Gong P, et al. A curcumina ativa o gene heme oxigenase-1 através da regulação do Nrf2 e do elemento responsivo antioxidante. Biochem J. 2003;371:887-895.
48. Paine A, Eiz-Vesper B, Blasczyk R, Immenschuh S. Sinalização para heme oxigenase-1 e seu potencial terapêutico anti-inflamatório. Biochem Pharmacol. 2010;80:1895-1903.
49. Slominski A, Paus R, Schadendorf D. Melanócitos como células "sensoriais" e reguladoras na epiderme. J Theor Biol. 1993;164:103-120.
50. Slominski RM, Zmijewski MA, Slominski AT. O papel do pigmento melanina no melanoma. Exp Dermatol. 2015;24:258-259.
51. Slominski A, Kim TK, Brozyna AA, et al. O papel da melanogênese na regulação do comportamento do melanoma: a melanogênese leva à estimulação da expressão de HIF-1alfa e vias dependentes de HIF. Arch Biochem Biophys. 2014;563:79-93.