Disfunção mitocondrial induzida por glicose e não induzida por glicose na doença renal diabética
Jan 17, 2024
Abstrato:Disfunção mitocondrialdesempenha um papel importante na patogênese e progressão dadoença renal diabética(DKD). Nesta revisão, discutiremos a disfunção mitocondrial observada emmodelos pré-clínicos de DKDbem como na DKD clínica com foco emfosforilação oxidativa(OXPHOS), mitocondrialespécies que reagem ao oxigênio(mtROS), biogênese, fissão e fusão, mitofagia e biomarcadores mitocondriais urinários. Disfunção mitocondrial induzida por glicose e não induzida por glicose será discutida. Em termos de disfunção mitocondrial induzida pela glicose, ocorre a mudança energética do OXPHOS para a glicólise aeróbica, chamada efeito Warburg, e os intermediários tóxicos resultantes do metabolismo da glicose contribuem paraLesão induzida por DKD. Em termos de disfunção mitocondrial não induzida por glicose, revisaremos os papéis da lipotoxicidade, hipóxia e vias vasoativas, incluindo vias de sinalização do receptor tipo A da endotelina-1 (Edn1)/Edn1. Embora a contribuição relativa de cada uma destas vias para a DKD permaneça obscura, o objetivo desta revisão é destacar a complexidade dadisfunção mitocondrialem DKD e discutir como os marcadores de disfunção mitocondrial poderiam nos ajudar a estratificarpacientes em risco de DKD.
Palavras-chave: doença renal diabética; disfunção mitocondrial;espécies reativas de oxigênio mitocondrial; Efeito Warburg

CLIQUE AQUI PARA OBTER EXTRATO DE CISTANCHE ORGÂNICO NATURAL COM 25% EQUINACOSÍDEO E 9% ACTEOSÍDEO PARA FUNÇÃO RENAL
1. Introdução
O número de pacientes com diabetes mellitus está aumentando edoença renal diabética(DKD) é uma causa importante demicrovascular diabéticacomplicações que constituem um fator de risco independente para mortalidade e eventos cardiovasculares [1].
O rim é um dos órgãos que mais demandam energia e, depois do coração, tem a segunda maior expressão de proteínas envolvidas na função mitocondrial e no consumo de oxigênio [2,3]. O rim requer energia principalmente para a reabsorção de solutos, entre outras tarefas, incluindo remoção de resíduos, manutenção do equilíbrio eletrolítico e hídrico e homeostase ácido-base [4]. A geração de um gradiente iônico através da membrana plasmática pela Na+/K+ -ATPase é essencial para a reabsorção de solutos. Portanto, postula-se que a disfunção mitocondrial desempenha um papel central na patogênese e progressão de doenças renais, incluindo DKD [5–7].
Como cada componente do néfron tem uma função distinta e diferentes necessidades energéticas, as causas e os fenótipos da disfunção mitocondrial podem diferir entre os tipos de células renais. Nesta revisão, discutiremos as vias de disfunção mitocondrial relacionadas e não relacionadas à glicose que contribuem para a DRD em termos de categorias e também de causas.
2. Disfunção mitocondrial em DKD
Devido ao papel crítico das mitocôndrias como potência das células, a disfunção mitocondrial tradicionalmente se referia a uma alteração na produção de trifosfato de adenosina (ATP) por fosforilação oxidativa (OXPHOS). No entanto, à medida que a nossa compreensão dos vários papéis desempenhados pelas mitocôndrias se expandiu, a disfunção mitocondrial inclui agora qualquer processo biológico anormal nas mitocôndrias [7]. Nesta seção, discutiremos diferentes categorias de disfunção mitocondrial que ocorrem na DKD e discutiremos seu potencial papel causal (Figura 1).

Figura 1. Disfunção mitocondrial na DKD. Se o nível de ERO mitocondriais está aumentado ou diminuído é controverso e pode variar dependendo do estágio da DKD. OXPHOS, mitofagia e biogênese geralmente estão diminuídos. O aumento da fissão e a diminuição da fusão causam fragmentação das mitocôndrias. OXPHOS: fosforilação oxidativa, ROS: espécies reativas de oxigênio, f: aumentado.: diminuído.
2.1. Fosforilação oxidativa mitocondrial (OXPHOS)
Como potência das células, o papel central das mitocôndrias é a produção de trifosfato de adenosina (ATP). Metabólitos de glicose, lipídios e aminoácidos são transportados para a matriz mitocondrial, servindo como substratos do ciclo do ácido tricarboxílico (ICA). NADH e FADH2 são gerados junto com os elétrons de alimentação da reação nos Complexos I e Il da cadeia de transporte de elétrons (ETC) . À medida que os elétrons são transportados através do, os íons H+ são bombeados para o espaço intermembranar. Complexo V ou ATP sintase usa esse gradiente de prótons para gerar ATP (Figura 2). Os índices de atividade e aptidão do OXPHOS incluem taxa de consumo de oxigênio (OCR), produção de ATP, potencial de membrana e avaliação de cada complexo (atividade, formação). Geralmente, foi observado que o OCR no córtex renal está aumentado na DKD inicial, seguido por uma diminuição à medida que a DKD progride, enquanto nos glomérulos e podócitos, o OCR está diminuído nas fases inicial e tardia da doença [5]. Embora exista alguma discrepância entre a produção de estudos e a atividade complexa tenha sido demonstrada como diminuída pelo menos no estágio tardio da DKD (8,9).A contribuição da diminuição da ativação de OXPHOS para DKD pode ser inferida a partir da observação de que algumas mutações genéticas em OXPHOS , como polimorfismos de nucleotídeo único (SNPs) na coenzima 05 (CO05) e citocromo oxidase (COX6A1), estão ligados à DKD em humanos (101. CO05 codifica metiltransferase localizada na matriz mitocondrial e COX6A1 codifica uma subunidade do citocromo c, que é parte da ETC.
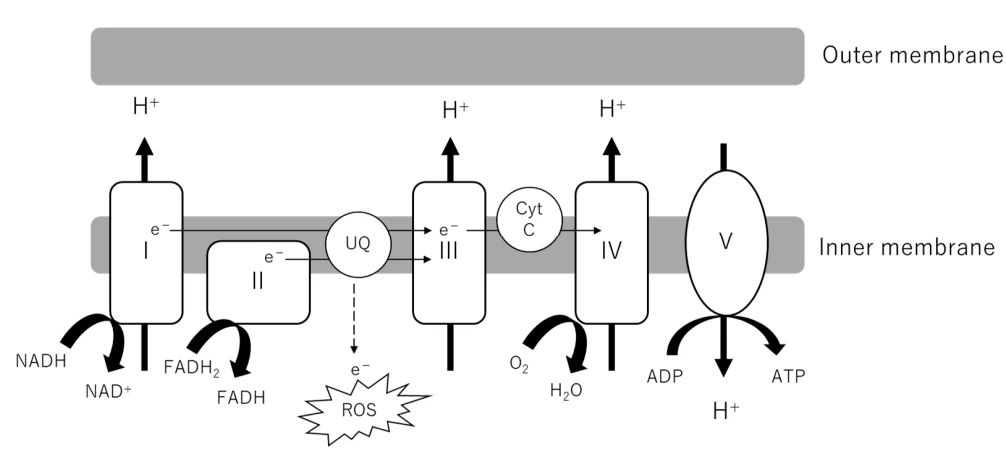
Figura 2. Cadeia de transporte de elétrons (ETC) na membrana interna mitocondrial. NADH e FADH2 do ciclo TCA doam elétrons para os Complexos I e II. À medida que os elétrons são transportados através do ETC, um gradiente de prótons é gerado, que o Complexo V ou ATP sintase acopla à síntese de ATP. O vazamento de elétrons do ETC causa a produção de ROS. ADP, adenosina difosfato; ATP, trifosfato de adenosina; Cyt C, complexo citocromo; ROS, espécies reativas de oxigênio; UQ, ubiquinona; Ciclo TCA, ciclo do ácido tricarboxílico.
2.2. Espécies reativas de oxigênio mitocondrial (mtROS)
Desde que Brownlee e colegas propuseram que as espécies reativas de oxigênio mitocondrial induzidas pela hiperglicemia (mtROS) eram o mecanismo unificador das complicações microvasculares diabéticas em 2000, esse paradigma tem sido prevalente [11,12]. Recentemente, a fonte de ERO na DKD e o papel patogênico das ERO tornaram-se controversos [13,14]. Embora possa haver um consenso de que o dano induzido por ERO é aumentado na DKD, existem estudos conflitantes em relação à mudança na produção de mtROS, o que pode ser atribuído aos diferentes métodos usados para detectar mtROS ou aos vários modelos ou pontos de tempo da DKD. Em rins de camundongos db / db vivos e fixos, foi observado aumento de ROS mitocondriais usando uma sonda de proteína fluorescente verde sensível à redução-oxidação localizada na matriz mitocondrial [15]. Por outro lado, em camundongos C57BL/6J injetados com estreptozotocina (STZ) e camundongos Ins{13}} Akita (camundongos DBA/B6 F1), foi observada diminuição do superóxido mitocondrial após administração sistêmica de diidroetídio (DHE), tanto em rins vivos quanto fixos [16]. O último estudo não exclui a produção de ERO em outros compartimentos celulares, incluindo o retículo endoplasmático (ER) ou sistemas enzimáticos como a nicotinamida adenina dinucleotídeo fosfato oxidase (Nox). Notavelmente, a restauração da biogênese mitocondrial e da atividade do OX PHOS pela ativação da proteína quinase ativada por adenosina monofosfato (AMPK) aumentou o mtROS e melhorou o fenótipo DKD, argumentando contra o papel do mtROS na incitação do DKD
As ERO não desempenham um papel exclusivamente prejudicial na biologia celular. A hormese mitocondrial é o conceito de que o superóxido mitocondrial ligeiramente aumentado na linha de base pode diminuir a suscetibilidade ao estresse celular mais severo [13]. As ERO também desempenham um papel essencial em certas vias de sinalização celular, exigindo maior elucidação das intrincadas características das ERO.
2.3. Biogênese
As células lidam com o aumento da demanda energética aumentando a biogênese mitocondrial, na qual mitocôndrias funcionais são geradas pela duplicação do DNA mitocondrial (mtDNA) e subsequente fissão binária. O coativador 1 do receptor ativado por proliferador de peroxissoma (PGC1) desempenha um papel central na biogênese mitocondrial [17]. PGC1 é um regulador transcricional das vias metabólicas mitocondriais, como a fosforilação oxidativa (OXPHOS), o ciclo do TCA e o metabolismo dos ácidos graxos. Os receptores ativados por proliferadores de peroxissoma PGC1 (PPARs) e os receptores relacionados ao estrogênio (ERRs) também podem servir como coativadores de PGC1. O PGC1 dimeriza com coativadores transcricionais para regular a transcrição gênica a jusante, e esses parceiros incluem fatores respiratórios nucleares 1 e 2 da proteína de ligação ao elemento responsivo ao AMP cíclico (CREB) (NRF1 e NRF2) e PPARs e ERRs ativados [4]. As vias de detecção de nutrientes, como o alvo mecanístico da rapamicina (mTOR), AMPK, sirtuína, AMP cíclico (cAMP) e monofosfato de guanosina cíclico (cGMP), regulam o PGC1 direta ou indiretamente.
Na DKD, embora haja alguma discrepância entre os estudos, possivelmente devido à análise em diferentes estágios da doença, considera-se que a atividade da PGC1 está aumentada no estágio inicial do diabetes, conforme demonstrado em camundongos db/db com 8-semanas de idade, seguido por uma diminuição na atividade em estágios posteriores, como demonstrado em pacientes pré-transplantados e camundongos 24 semanas após a indução do diabetes com injeção de STZ [8,16,18,19]. O gene 1 regulado positivamente pela taurina (Tug1), um gene não codificador longo, foi descrito como um regulador de PGC1 em podócitos em DKD [20]. Foi demonstrado que Tug1 se liga a um elemento a montante de Ppargc1a e interage com a ligação de PGC1 ao seu próprio promotor, aumentando subsequentemente a atividade do promotor Ppargc1a.
2.4. Fissão e Fusão Mitocondrial
As mitocôndrias são organelas dinâmicas que passam por processos rigidamente controlados de fissão e fusão. A fissão mitocondrial é mediada pela proteína semelhante à dinamina (DRP1) e seus receptores, como o fator de fissão 1 (FIS1), o fator de fissão mitocondrial (MFF) e proteínas de dinâmica mitocondrial de 49 e 51 kDa (MID49 e MID51). A fusão mitocondrial é mediada pelas longas isoformas da proteína de atrofia óptica 1 (OPA1), que desempenha um papel na fusão da membrana mitocondrial interna, e pelas mitofusinas (MFN1 e MFN2), que desempenham um papel na fusão da membrana mitocondrial externa [5,6].
Embora o aumento na fissão mitocondrial e fatores de fusão, como as isoformas longas de OPA1, MFN1, MFN2 e MFF, tenham sido observados no DKD inicial, as mitocôndrias foram consistentemente fragmentadas ao longo dos estágios iniciais e finais em ratos injetados com STZ [8]. Biópsias renais humanas de pacientes com DKD também demonstraram mitocôndrias fragmentadas em podócitos e células tubulares proximais [21,22]. Consistente com o aumento da fissão e diminuição da fusão, a expressão de Drp1 e FIS1 foi aumentada, enquanto a expressão de MFN2 mostrou estar diminuída nos túbulos no último estudo.
2.5. Mitofagia
A autofagia é uma via que degrada e recicla organelas e macromoléculas danificadas, e a autofagia seletiva das mitocôndrias é denominada mitofagia. A mitofagia tem um papel crítico na manutenção da qualidade mitocondrial, removendo mitocôndrias danificadas. A mitofagia pode ser mediada pela suposta quinase 1 induzida por homólogo de fosfatase e tensina (PINK1)/via mediada por parkina e outras proteínas da membrana mitocondrial externa, como BCL2/adenovírus E1B proteína 3 de interação com a proteína de 19 kDa (BNIP3) e NIP{{10 }}como a proteína X (NIX), ou a proteína 1 contendo o domínio FUN14 do receptor de mitofagia (FUNDC1).
As vias mediadas por PINK1 e parkin foram investigadas mais extensivamente que as outras [23]. PINK1 possui um domínio Ser/Thr quinase e é encontrado inserido nas membranas mitocondriais interna e externa. Nas mitocôndrias saudáveis, o PINK1 é clivado em dois pontos pelas proteases mitocondriais, levando à sua dissociação da membrana mitocondrial e à degradação pelo sistema ubiquitina-proteassoma. Nas mitocôndrias despolarizadas, o PINK1 escapa da clivagem e reside de forma estável na membrana externa. Posteriormente, PINK1 homodimeriza e autofosforila para recrutar E3 ubiquitina ligase parkina e ubiquitina, direcionando as mitocôndrias para a via da mitofagia. Na via independente da ubiquitina, proteínas da membrana mitocondrial externa, como BNIP3, NIX ou FUNDC1, recrutam a cadeia leve 3 da proteína 1A/1B associada aos microtúbulos (LC3) e induzem a mitofagia sob certos estímulos, incluindo hipóxia [24,25]. A cardiolipina, que está localizada na membrana mitocondrial interna em condições normais, é externalizada por certos estímulos e detectada pelo LC3, facilitando o envolvimento das mitocôndrias pelos autofagossomos [26]. P62 é um marcador de carga autofágica e seu acúmulo pode indicar estagnação na degradação via fluxo autofágico. Em geral, os níveis basais de mitofagia dos podócitos são elevados, o que pode ser atribuído às suas características terminalmente diferenciadas. Em contraste, nas células tubulares o nível de mitofagia é baixo no início, mas pode ser induzido como consequência do estresse.
A mitofagia é suprimida na DKD, o que foi demonstrado por baixos níveis de expressão de PINK1 / parkin em podócitos de camundongos diabéticos induzidos por STZ e aumento dos níveis de expressão de p62 em células tubulares de biópsia obtidas de pacientes com DKD [27–29]. A proteína que interage com a tiorredoxina (TXNIP) foi implicada na supressão da autofagia tubular e da mitofagia induzida por níveis elevados de glicose (27). Também foi demonstrado que a glicose elevada inibe a atividade transcricional da classe O1 da forkhead-box (FoxO1) por meio de sua fosforilação pela Akt (proteína quinase B), levando à regulação negativa do PINK1 (29). O efeito protetor da mitoquinona na DKD foi parcialmente atribuído à restauração da expressão da proteína PINK1 e parkina em células tubulares via ativação de NRF2 [30].
2.6. Biomarcador Mitocondrial Urinário
É importante detectar DKD no estágio inicial da doença de maneira confiável, preferencialmente antes que a microalbuminúria ou uma diminuição na taxa de filtração glomerular estimada (TFGe) se tornem evidentes, para evitar progressão adicional para doença renal em estágio terminal. Como se acredita que a disfunção mitocondrial precede alterações histológicas evidentes na DKD, biomarcadores de disfunção mitocondrial foram recentemente investigados vigorosamente. Embora esses estudos tenham investigado pacientes com DKD estabelecida, eles podem ser úteis para identificar biomarcadores em pacientes afetados por DKD. Um estudo de metabólitos na urina encontrou supressão global na respiração mitocondrial em pacientes com DKD em comparação com controles sem DKD [19]. Em concordância com a noção de que o mtDNA é liberado de células tubulares danificadas, o mesmo estudo demonstrou aumento do mtDNA na urina. Embora o mtDNA urinário tivesse uma correlação inversa modesta, mas significativa, com o mtDNA intra-renal e a TFGe no início do estudo, foi encontrada uma correlação positiva com a fibrose intersticial. O mtDNA urinário ou o mtDNA de amostras de biópsia não se correlacionaram significativamente com o declínio da TFGe nos 24 meses de acompanhamento [31]. Investigações adicionais são necessárias para determinar se os biomarcadores mitocondriais podem ser usados clinicamente
Serviço de apoio da Wecistanche - o maior exportador de cistanche da China:
E-mail:wallence.suen@wecistanche.com
Whatsapp/Tel:+86 15292862950
Compre para obter mais detalhes de especificações:
Disponível em: https://www.xjcistanche.com/cistanche-shop