[6]-Gingerol facilita a secreção de CXCL8 e a produção de ROS em neutrófilos humanos primários, visando o canal TRPV1 parte 1
Jul 19, 2023
1. Introdução
A identificação de ingredientes alimentícios com propriedades imunomoduladoras juntamente com seus respectivos alvos moleculares tem atraído interesse crescente nos últimos anos. Devido à sua alta diversidade de ligantes, a superfamília de potenciais receptores transitórios de canais iônicos (canais TRP) representa uma classe muito interessante de estruturas-alvo potenciais.
Um alvo molecular é uma molécula específica na qual uma droga age no corpo. Imunidade refere-se à força da capacidade do corpo de resistir a doenças.
Existe uma estreita relação entre os alvos moleculares e a imunidade. Os efeitos das drogas geralmente afetam a imunidade do corpo. Por exemplo, certos medicamentos podem tratar certas doenças crônicas ao interferir na função do sistema imunológico de um organismo. Além disso, o tratamento do tumor geralmente usa terapia direcionada, ou seja, direcionar certos alvos moleculares para atacar as células cancerígenas, melhorando assim a capacidade da imunidade para combater as células cancerígenas.
Além disso, a força da imunidade também afetará o efeito das drogas. Pessoas com sistema imunológico enfraquecido podem apresentar efeitos colaterais ou medicamentos menos eficazes quando usados porque o sistema imunológico não absorve bem os medicamentos, resultando em tratamento menos eficaz. Portanto, manter um sistema imunológico saudável é muito importante para a terapia medicamentosa.
Em conclusão, existe uma estreita ligação entre alvos moleculares e imunidade, e o entendimento completo dessa relação é de grande importância para o uso racional de medicamentos. Devemos melhorar ativamente nossa imunidade, usar medicamentos corretamente de acordo com o conselho do médico e melhorar a imunidade por meio de terapia direcionada para proteger melhor nossa saúde. Desse ponto de vista, precisamos melhorar nossa imunidade. Cistanche pode melhorar significativamente a imunidade porque Cistanche também tem efeitos antivírus e anticancerígenos, que podem fortalecer a capacidade do sistema imunológico de lutar e melhorar a imunidade do corpo.
Clique em benefícios para a saúde de cistanche
A superfamília de canais TRP de mamíferos inclui seis famílias de proteínas relacionadas, a saber, a anquirina (TRPA), a canônica (TRPC), a melastatina (TRPM), a mucolipina (TRPML), a policistina (TRPP) e a família vanilóide (TRPV). todos os quais normalmente compartilham seis segmentos transmembranares que se agrupam como tetrâmeros para formar poros permeáveis a cátions com seletividade catiônica variável.[1] O canal TRPV1 pode ser, de longe, o membro mais intensivamente investigado da superfamília TRP. O TRPV1 foi inicialmente identificado como o receptor da capsaicina, o componente pungente das pimentas.[2] Mais tarde, também foi demonstrado que os ingredientes pungentes do gengibre, os gingeróis, ativam o TRPV1.[3]
O papel biológico do TRPV1 em tipos de células não neuronais ainda está sob extensa investigação, mas os resultados disponíveis implicam funções muito além da percepção sensorial e térmica. Por exemplo, uma intervenção de 12-semana com uma dose diária de 0,15 mg do agonista TRPV1 nonivamida, um análogo estrutural da capsaicina, impediu um ganho induzido pela dieta na massa de gordura corporal e aumentou a serotonina plasmática níveis em indivíduos saudáveis com sobrepeso.[4]
Em adipócitos 3T3-L1, a ativação de TRPV1 por nonivamida diminuiu o acúmulo de lipídios durante a diferenciação e maturação suprimindo a expressão de PPAR𝛾.[5] Em macrófagos, capsaicina e nonivamida atenuaram uma liberação induzida por LPS de citocinas pró-inflamatórias como IL6, CXCL8 e TNF-alfa, de maneira dependente de TRPV1-.[6] No entanto, as funções específicas do TRPV1 nos leucócitos do sangue humano permanecem vagas. Em células NK humanas, 10 e 50 μM de capsaicina induziram um aumento nas concentrações intracelulares de Ca2 plus, indicando um canal TRPV1 funcional.[7]
No entanto, funções efetoras de células NK amortecidas, como degranulação citotóxica e secreção de citocinas, induzidas pelo pré-tratamento das células com capsaicina por 1 h em uma faixa de concentração de 10–100 μM, foram amplamente independentes de TRPV1.[7 ] Nas células T, foi documentado que o TRPV1 está envolvido nos processos de sinalização do receptor de células T, proliferação e diferenciação de células T, bem como na produção de citocinas.[8] Trabalhos anteriores de nosso grupo também demonstraram a expressão funcional de TRPV1 em células T primárias humanas.[9] Além disso, análises dose-resposta em concentrações variando de 0,03 a 300 μmol L−1 revelaram que o [6]-gingerol inibe a secreção de citocinas por leucócitos humanos primários com um valor de IC50 de 82,2 μmol L−1.
No entanto, a quantificação de [6]-gingerol em amostras de plasma de indivíduos saudáveis revelou uma concentração plasmática máxima média de apenas 42,0 ± 16,3 nmol L−1 após a ingestão de 1 L de chá de gengibre. Como essas concentrações de [6]-gingerol não tiveram impacto significativo na secreção de citocinas em estudos anteriores,[9] não está claro se uma concentração dietética relevante de 50 nmol L-1, sendo alcançada no plasma sanguíneo após o consumo de 1 L de gengibre chá, é suficiente para modular as respostas imunes celulares em outros leucócitos primários humanos.
Para neutrófilos humanos, o conhecimento sobre o papel funcional do TRPV1 é limitado. Considerando que Köse e Naziroglu˘ [10] mostraram fluxos de Ca2 mais em neutrófilos em resposta a 10 μM de capsaicina diminuídos pelo antagonista TRPV1 capsazepina, outros resultados não demonstraram que a capsaicina induz um influxo de Ca2 mais quando testada em uma faixa de concentração de 1 –100 μM, apesar de uma expressão de RNA TRPV1 detectável.[11]
Os neutrófilos são os leucócitos mais abundantes no sangue humano, representando 60-70 por cento de todos os glóbulos brancos circulantes. São as primeiras células imunológicas recrutadas para os locais de infecção; eles são, portanto, frequentemente referidos como a primeira linha de defesa.[12] O recrutamento de neutrófilos é desencadeado, entre outros, pelo peptídeo bacteriano ou derivado de mitocôndria N-Formilmetionina-leucil-fenilalanina (fMLF) ou quimiocinas como CXCL8 (IL-8).[13]
Os mecanismos de defesa dos neutrófilos incluem fagocitose,[14] liberação de enzimas antimicrobianas via degranulação,[15] geração de espécies reativas de oxigênio (ROS)[16] e a formação de armadilhas extracelulares de neutrófilos.[17] Além desses mecanismos de defesa diretos, os neutrófilos contribuem ainda mais para as respostas imunes subsequentes por meio da liberação de várias citocinas e quimiocinas.[18] Além disso, os neutrófilos podem passar por um processo de priming que lhes permite responder mais fortemente à ativação completa subsequente.[16b]
Nos últimos anos, tem crescido a evidência de que ingredientes de alimentos e/ou plantas medicinais podem modificar uma ou mais das mencionadas respostas de defesa dos neutrófilos humanos. Essas modificações incluem atividade fagocítica aumentada[19] e geração de ROS,[20] quimiotaxia aumentada para fMLF[21] e formação de armadilhas extracelulares de neutrófilos.[20] No entanto, o(s) composto(s) ativo(s) não foram identificados. Os constituintes de Ferula akitschkensis (𝛽-pineno, sabineno, 𝛾-terpineno, geranil acetona e acetato de isobornil) dessensibilizaram neutrófilos ao influxo de Ca2 plus induzido por fMLF- e CXCL8- e inibiram a quimiotaxia induzida por fMLF, em que o geranil acetona- os efeitos induzidos foram mediados via TRPV1.[22]
Com base nos dados disponíveis, levantamos a hipótese de que a ativação induzida por ligante de TRPV1 por [6]-gingerol pode afetar as funções gerais dos neutrófilos, diretamente ou por meio do aumento de suas respostas a estímulos ativadores. No âmbito desta hipótese, visamos particularmente elucidar se uma concentração nutricionalmente relevante verificada é suficiente para modular as respostas imunes celulares em neutrófilos primários humanos como parte da população de leucócitos. '
Além disso, procuramos comparar os níveis de expressão de RNA de todos os membros da superfamília mamífera TRP em cinco dos tipos de células mais proeminentes no sangue humano para obter uma visão qualitativa e quantitativamente abrangente da expressão do canal TRP em leucócitos humanos.
2. Resultados
2.1. Abundância e Níveis Relativos de Transcrição de Canais TRP em Leucócitos Humanos
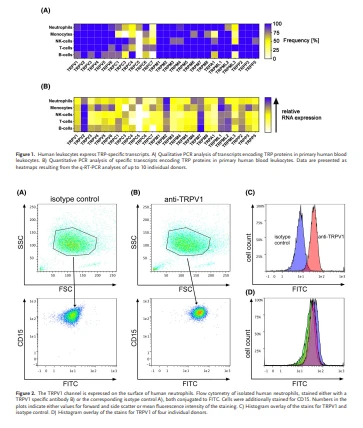
Para avaliar a expressão do RNA do canal TRP em leucócitos sanguíneos, cinco dos tipos de células leucocitárias mais proeminentes foram isolados do sangue de doadores saudáveis, e a expressão do RNA dos canais TRP foi analisada por meio de RT-PCR quantitativo (Figura 1).
Transcrições específicas do TRPV, bem como da família TRPM, foram detectadas com altas frequências de 75–100 por cento em todos os tipos de células analisados. A frequência geral média considerando todos os tipos de células foi de 96 por cento para a família TRPV e 98 por cento para a família TRPM. Os transcritos específicos de TRPC foram muito menos abundantes, variando de 0% em monócitos, células NK, células T e células B a 100% em células NK e células T com uma frequência média geral de apenas 53% (Figura 1A). O transcrito específico TRPC5-foi detectado apenas em neutrófilos, com uma frequência de 70 por cento.
Além disso, o transcrito específico do TRPA1-geralmente revelou uma abundância bastante baixa nos tipos de células analisados com uma frequência de 100 por cento em neutrófilos, 25 por cento em monócitos, 80 por cento em células NK, 100 por cento em células T e 60 por cento por cento em células B. Da mesma forma, o transcrito específico TRPML3-mostrou uma frequência baixa em neutrófilos (50 por cento), monócitos (25 por cento), células NK (40 por cento) e células B (20 por cento), mas uma frequência de 100 por cento em células T. A transcrição específica do TRPV1-foi detectada em todos os tipos de células, mostrando uma frequência de 100% em monócitos, células NK e células T, e uma frequência de 90% em neutrófilos e 80% em células B.
Em relação à expressão relativa do RNA, em relação às respectivas frequências, os canais TRP revelaram um padrão de expressão mais específico do tipo celular, evidenciado pela comparação dos respectivos valores de Δct nos diferentes tipos celulares analisados (Figura 1B). Por exemplo, o TRPP3 foi detectado com uma frequência de 100% em todos os tipos de células, mas revelou o nível de expressão mais alto em monócitos.
Em contraste, o canal TRPV2 foi detectado em todos os tipos de células investigados, com um nível de expressão de RNA comparativamente alto, bem como uma alta frequência. Da mesma forma, os níveis de transcrição de TRPV1 foram semelhantes em todos os tipos de células examinadas (Figura 1B).

2.2. Expressão de superfície TRPV1 em neutrófilos
O conhecimento atual sobre a função do TRPV1 em neutrófilos humanos ainda não está claro. Para explorar ainda mais os papéis do TRPV1 em neutrófilos humanos, investigamos a seguir se o canal TRPV1 é expresso na superfície de neutrófilos humanos primários usando citometria de fluxo de células vivas (Figura 2).
Os neutrófilos isolados foram corados para CD15 como um marcador de superfície para neutrófilos (Figura 2A, B) e simultaneamente corados com um anticorpo criado contra um epítopo no primeiro loop extracelular da proteína TRPV1 (Figura 2B) ou o respectivo controle de isotipo, o este último servindo como um substituto para medir a ligação inespecífica (Figura 2A). Dentro da população CD15 plus, a intensidade de fluorescência para FITC foi analisada. A coloração dos neutrófilos com o anticorpo TRPV1 levou a um sinal de fluorescência distinguível em comparação com o controle de isotipo, confirmando assim a expressão de superfície de TRPV1 em neutrófilos humanos primários (Figura 2C). A análise de neutrófilos de quatro doadores individuais revelou uma expressão de superfície comparável de TRPV1 (Figura 2D).
2.3. Aumento Induzido por [6]-Gingerol no Ca2 Plus Intracelular
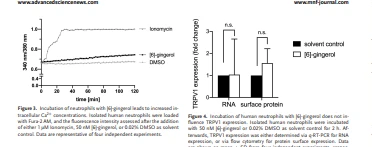
Uma vez que a ativação de TRPV1 induzida por ligante resultará em um influxo de Ca2 plus, [23] as concentrações intracelulares de Ca2 plus de neutrófilos foram determinadas por meio do corante sensível a Ca2 plus Fura-2. Com base em nossos achados anteriores,[9] uma concentração de 50 nM do conhecido ligante TRPV1 [6]-gingerol e um tempo de incubação de 2 h foram escolhidos. As análises mostraram que a incubação de neutrófilos com 50 nM [6]-gingerol resultou em aumento das concentrações intracelulares de Ca2 plus que foram em média 18,4 por cento ± 1,0 por cento do valor máximo, conforme determinado pela aplicação de 1 μM do ionóforo ionomicina. O aumento induzido pelo DMSO foi de 4,7 por cento ± 1,2 por cento (Figura 3).
2.4. Impacto do [6]-Gingerol na expressão do TRPV1
Em seguida, objetivamos analisar o impacto da estimulação de TRPV1 por [6]-gingerol na expressão de TRPV1 no nível de transcrição via q-RTPCR, bem como no nível de proteína de superfície por meio de coloração de células vivas. Para tanto, neutrófilos humanos foram incubados com [6]-gingerol 50 nM por 2 h, e os respectivos níveis de expressão foram quantificados.
Esta incubação de 2 h não afetou o transcrito de TRPV1 nem os níveis de proteína (Figura 4) e também não alterou, exceto para IL6, IL17A, IL24, C5 e GDF5, a expressão de RNA de genes comuns de citocinas e quimiocinas investigados (Figura S1, Tabela S2, Informações de Apoio).

2.5. Impacto de [6]-Gingerol na expressão de marcadores de superfície de neutrófilos
Neste conjunto de experimentos, perguntamos se o [6]-gingerol tem impacto na expressão de marcadores de superfície comuns para neutrófilos. Observamos que a expressão dos marcadores CD11b e CD66b foi aumentada após o período de incubação de 2 h com [6]-gingerol quando comparado ao controle de solvente, enquanto CD62L não foi afetado (Figura 5). Além disso, a expressão de superfície do receptor fMLF FPR1 foi significativamente elevada após o tratamento das células com [6]-gingerol 50 nM em comparação com o controle de solvente.
For more information:1950477648nn@gmail.com